

カンクサにおける老化および高度な糖化最終生成物の非侵襲的バイオマーカーとしての自己蛍光
Apr 11, 2023
議論
これまで、自己蛍光は老化のバイオマーカーとして加齢色素であるリポフスチンをモニタリングするために使用されてきました。4,13。 赤色が観察されましたが、フロリダ以前の研究で見られたリポフスチンを示す蛍光9、 青フロリダM165 FCを使用して線虫を検査したところ、人生の初期段階で蛍光が検出されましたフロリダ蛍光実体顕微鏡 (Leica Microsystems、東京、日本) (データは示されていません)。 本研究の目的は、青色の自家蛍光が個々の線虫の老化を追跡するためのより感度の高いマーカーとして機能するかどうかを調べることでした。
シスタンケ・フォーアンチ老化
アンチエイジング シスタンシュ製品の出荷準備完了
のフロリダ個々の線虫で測定された蛍光は年齢とともに増加しました。 虫が減れば減るほどフロリダ蛍光があればあるほど、平均寿命は長くなります。 したがって、青フロリダ蛍光は老化を追跡するための代替バイオマーカーを提供する可能性があります。 しかし、ピンカスら。 その後(24時間以内に)寄生虫が死亡したと報告しました。フロリダキヌレニンの生合成により蛍光を発します。 その研究者たちはこれをブルーライトと名付けました"死フロリダ蛍光"。 報道によると死亡フロリダ蛍光再フロリダキヌレニン経路によって生成されるアントラニル酸のグリコシル化型による発光に影響を与える。 自動車フロリダリソソーム様腸顆粒で蛍光物質が検出される31。 この青い光は、コバーンらが発見したのと同じ死のマーカーである可能性があります。 で観察されたC.エレガンスこの症状は死亡の前後数時間にわたり、致命的な損傷を受けた若い線虫と老衰で自然死した線虫の両方に見られたと報告されている。 実際、私たちは次のことを観察しました。種類-1キヌレニナーゼ活性を欠く変異体は、野生型よりも自己蛍光が弱かった。 しかし、私たちの結果は、青色の一部がフロリダ蛍光は死ではなく老化と関連しています。 特に、図に示すように、3b、老化した虫は青色が増加したフロリダ死亡前 2 日以内に得られたデータを除外した場合でも蛍光。 さらに、虫はまだフロリダ状態に関係なく、加齢とともにより多くの蛍光が発生します。キヌ-1遺伝子。 削減フロリダの蛍光キヌ-1したがって、突然変異は喪失によるものであるはずです死の欠如ではなく、キヌレニンによるAGE合成の加速の影響フロリダ蛍光32.
特定のAGE化合物は、フロリダ蛍光性の27。 私たちは青色だと推測しましたフロリダ蛍光には、死に起因するものとは別に、それらの AGE からの放射が含まれる可能性があります。フロリダ蛍光。 抽出された線虫タンパク質を in vitro で糖類とインキュベートすると、フロリダ蛍光強度とAGEsレベルは時間の経過とともに増加しました。 リボースを含む培地で培養された線虫フロリダ対照動物よりも多くの蛍光を発する動物は、たとえキヌ-1変異していました。 対照的に、AGEs 生成の既知の阻害剤であるリファンピシンの存在下で培養された線虫は、青色レベルの低下を示しました。フロリダ蛍光。 実際、蛍光顕微鏡検査では、13- 日齢の線虫は、3- 日齢の若い成虫よりも多くの青色光を発していることが示されました。 抗 CML 抗体または抗ペントシジン抗体による免疫染色では、青色に似た分布パターンで拡散的に広がる AGE の存在を示すことができませんでした。フロリダ蛍光。 のフロリダ蛍光は他の豊富な物質から発生する可能性がありますフロリダ蛍光性AGEs(ベスパチンA、LM-1、アルグピリミジンなど)33,34.
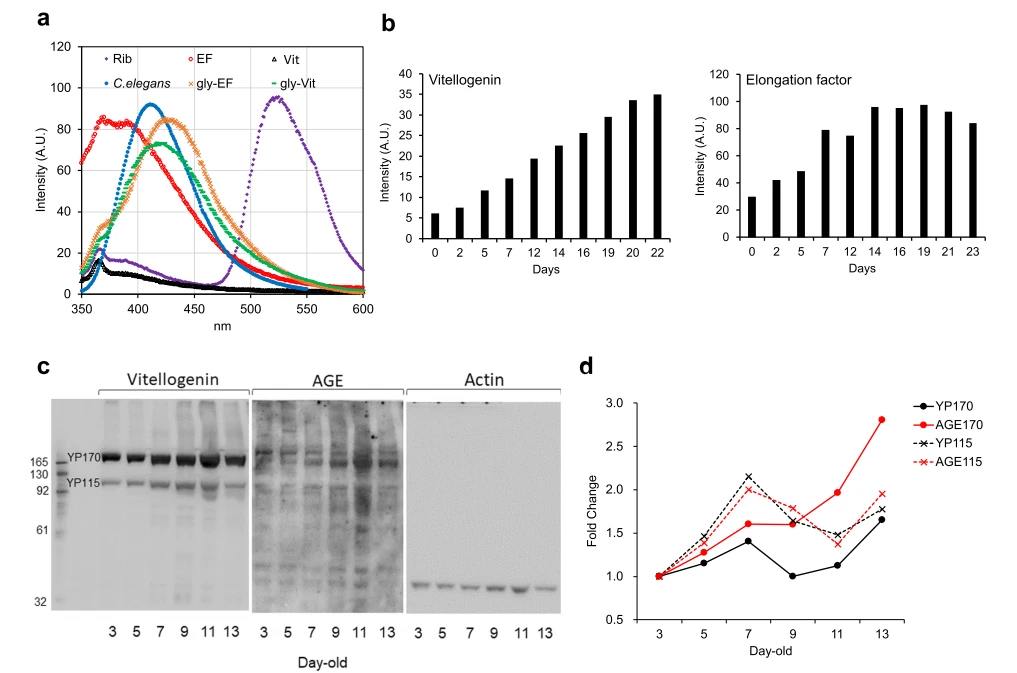
オーシストに卵黄を提供するには、C.エレガンス雌雄同体は自分自身の腸バイオマスを消費し、その結果、後年に腸の萎縮と異所性の卵黄の沈着を引き起こします。 以前に報告されているように、ビテロゲニン (卵黄タンパク質) は、老齢の線虫では (若い動物と比較して) 2 倍高いレベルで存在していました。35、6倍以上を示しましたフロリダin vitro での糖化後の蛍光。 これらのデータは、ビテロゲニン自体が生成する生成物が12-倍増加することを示唆していますフロリダ理論的には、若い成虫と比較した高齢の虫の蛍光。 ウェスタンブロッティングにより、抗CML抗体と反応する主なバンドは卵黄タンパク質であることが示されました。 この発見は、ビテロゲニンの重度の糖化を検出した中村らの以前の報告と一致します。36、および Golegaonkar らは、リファンピシンで処理した線虫のビテロゲニン-2、ビテロゲニン-6、および伸長因子 1 αの糖化の減少を検出しました。30。 報告によると、ビテロゲニンは抗酸化物質として機能し、ミツバチの女王蜂の長寿に貢献します37。 のC.エレガンス、ビテロゲニンはストレス耐性において重要な役割を果たします 38. 抗酸化物質はそれ自体簡単に酸化される可能性があるため、糖化ビテロゲニンの蓄積は酸化損傷からの保護を損なう可能性があり、その結果、平均余命と青の強度の間に反比例の関係が生じます。フロリダ今回の研究で観察された蛍光。 しかし、Sornda et al. 最近、寿命はYP115/YP88(ビテロゲニン-6)を介した酸化ストレス耐性と無関係であることが報告されました。39。 これらの研究者らは、ビテロゲニンに由来するビテロゲニン YP170 の蓄積が原因であると提案しました 1–5、腸の萎縮と寿命の減少を引き起こす一方、YP115/YP88の蓄積は腸の萎縮を遅らせ、寿命を延ばす可能性があります。 したがって、ビテロゲニン-6の糖化とその結果として生じる機能不全が老化に寄与している可能性があります。 伸び率はあるものの、フロリダインビトロでの糖化後には 3 倍強く蛍光を発するが、これらのタンパク質の量は若い虫と古い虫の間で同様であった。 したがって、自己蛍光の増強に対するこの因子の寄与は、ビテロゲニンに起因する寄与よりも小さい可能性があります。
シスタンケ~のモデルとして一般的に使用されています勉強老化と抗老化の介入。 私たちは、長寿効果を調査するためのモデルとして線虫を使用することを提案しました。乳酸菌の8。 (本研究における)青色の実証を考えると、フロリダ線虫の蛍光はAGEs蓄積の指標となる可能性があり、我々は次のように提案する。シスタンケ 雌雄同体は、AGEs 生成の抑制を介して作用する抗老化介入の有用性を調査するためのモデルとして役立ちます。 対照的に、ビテロゲニンは不足しているはずであるため、雄の線虫の場合、自家蛍光が老化のバイオマーカーになる可能性は低いです。
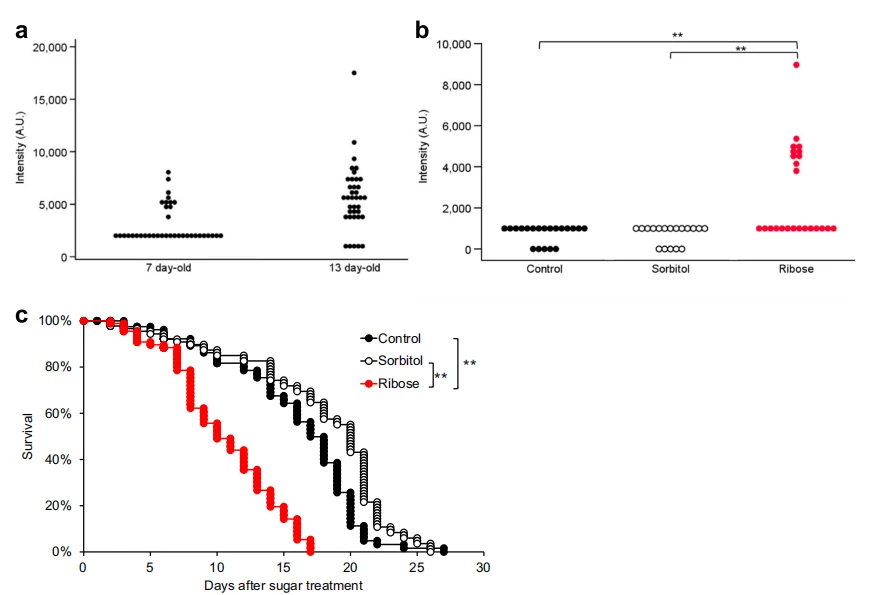
図 5 kynu-1 変異体からの青色蛍光。死滅蛍光を発しないはずです。 ある7- 日目と 13- 日目の蛍光強度 (ex 340/em 430)キヌ-1突然変異体(n = 各37); 古いワームは依然として放出量が多いフロリダにもかかわらず、若い虫よりも蛍光が強い。キヌ-1突然変異。 ただし、兆候はありませんフィフィMann 法により自家蛍光値に差異は検出されませんでした。–ホイットニーU テスト。b リボースで飼育された7-日齢の線虫はより青く発光したフロリダにもかかわらず蛍光種類-1突然変異。 青フロリダの蛍光C.エレガンスリボースで増殖(n = 24) またはソルビトール (n = 18) 糖類を含まない対照線虫と比較しました (n = 20)。 自己蛍光値は、ノンパラメトリック Steel を使用して比較されました。–ドワス法 (**p < 0.01). c 生存曲線C.エレガンスリボースで増殖(n = 62) またはソルビトール (n = 84) 糖類を含まない対照線虫と比較しました (n = 64)。 ワームは 0 日に生後 3 日目でした。 線虫の生存はカプランによって計算されました–マイヤー法および生存率の差は、ログランク検定 (**) を使用して有意性について検定されました。p < 0.01).
方法
線虫シスタンケ ブリストル株 N2 およびその派生変異株は、ミネソタ大学 Caenorhabditis Genetics Center のご厚意により提供されました。 この研究で使用された変異は CB1370 でしたダフ-2 (e1370)とCB1003キヌ-1 (e1003)。 線虫は、標準的な技術に従って NGM 上で維持および繁殖させました 40. 前述のように、次亜塩素酸ナトリウム/水酸化ナトリウム溶液に曝露した後、成虫から虫卵を回収しました 41. 卵懸濁液を 25 度で一晩インキュベートして孵化させ、懸濁液をL1-ステージの虫を156×で遠心分離しましたg 1分間 上清を除去し、残った幼虫を、大腸菌OP50株(OP50)。 菌株は、mNGM 寒天プレート上で 25 度で増殖させました。ダフ-220度でL4段階まで生育した株。 すべてのアッセイは、25 度で産卵を開始した若い成虫で開始されました。 線虫には倫理的な承認は必要ありませんでした。細菌株OP50 は、国際的に確立された線虫の餌として使用されていました。 OP50 の培養にはトリプトン大豆寒天 (日水製薬、東京、日本) を使用しました。 細菌 (湿重量 100 mg) を 0.5 mL の M9 緩衝液に懸濁しました。 次に、特に明記しない限り、細菌懸濁液の 50- μ L アリコートを直径 5.5- cm プレート内の mNGM 上に広げました。

自家蛍光の多変量解析
励起-発光マトリックス (EEM) を使用して分析フロリダ蛍光分光法。 多変量解析(複数の単一波長励起による)波長発光、同期走査フロリダウロメトリー)、単一スキャン励起と同期励起から構成される EEM プロットが得られました。蛍光各系列のスペクトルを描画しました。
老化した線虫の蛍光スペクトル
SF6 データ処理ソフトウェアを備えたマイクロプレート リーダー モデル SH-9000 ラボ(コロナ電気、茨城県、日本)。 各測定は 3 回実行されました。

生きた虫個体の自家蛍光の測定(ラップドロップ法)
ただし、空の (M9 バッファーのみ) データは 3 回チェックされ、それぞれの井戸を考慮して、変動井戸から井戸へ。 最小検出限界および定量限界は、毎日のブランクデータに基づいて次のように決定されました。μ (ブランクの平均)プラス3.29σ (標準偏差)とμプラス√2 × 10σ、 それぞれ。 各線虫の体内の自家蛍光
マルチモードグレーティングマイクロプレートリーダーで捕捉されました。 後測定では、各線虫は個別に 4.0-cm で維持されました。OP50 (2 mg/10) で覆われた直径プレートμL M9 バッファー)25 度。 各アッセイは最低 20 匹の虫に対して実施され、2 回繰り返されました。
平均余命測定
線虫は、OP50 で覆われた mNGM プレート上で 25 度で生後 13 日目まで維持されました。 による評価後、蛍光アッセイでは、各 30 匹の虫がOP50で覆われた別の新しいmNGMプレートに移した。 プレートを 25 度でインキュベートし、生きている虫と死んだ虫を 24 時間ごとに記録しました。 ワームピッカーで優しく触れても反応しなかった場合、ワームは死んだとみなされました。

in vitro 糖化後の AGEs
100を追加μウェルあたり 1 mol/L 硫酸 L。 それぞれの吸光度は450 nm (サブ: 650 nm) でのウェルをすぐにマイクロプレートリーダーで測定しました。 ELISA は各試験条件で 3 回実行されました。
老化した線虫のウェスタンブロッティング
サンプルは4×ボルトで処理されました™ LDS サンプルバッファー (Thermo Fisher Scientiフィフィc) と 10× ボルト™ サンプル還元剤 (Thermo Fisher Scienti)フィフィc)、および 1.5 を含む各サンプルμ総タンパク質 g をボルトで実行™ 4–12% Bis-Tris Plus Gel (Thermo Fisher Scienti)フィフィc)。 次に、タンパク質をゲルからポリビニリデンに転写しました。フロリダフッ化物膜(ATTO、東京、日本)で処理し、PBS- 0.1パーセントのTween 20中の5パーセントのスキムミルクで1時間ブロックしました。 メンブレンを抗AGE(抗CML)モノクローナル抗体(クローン番号6D12、1:1000)とともに4℃で一晩インキュベートし、PBS-Tで洗浄し、室温で1時間インキュベートしました。 h ペルオキシダーゼ結合ヤギ抗マウス IgG 抗体 (1:25、000)。 PBS-Tで洗浄した後、メンブレンをECLプライムウェスタンブロッティング検出試薬(GE Healthcare UK、英国リトルチャルフォント)とともにインキュベートし、ChemiDoc Touch Imaging System(Bio-Rad、米国カリフォルニア州ハーキュリーズ)またはImageQuantを使用してスキャンしました。 LAS 500 (GE ヘルスケア英国)。 次いで、膜をPBS-Tで洗浄し、ウエスタンBLoTストリッピングバッファー(タカラ、滋賀県、日本)とともに室温で30分間インキュベートし、再度PBS-Tで洗浄した。 膜を抗ビテロジェニン抗体 YP115 および YP170 (それぞれ 1:10,000) によって 4 度で一晩再プローブしました。42、PBS-Tで洗浄し、ペルオキシダーゼと結合したヤギ抗ラットIgG抗体(1:2000)(Proteintech、米国イリノイ州ローズモント)とともに室温で2時間インキュベートしました。 ローディングコントロールとして、抗アクチン抗体 (クローン番号 C4; Merck KGaA、ダルムシュタット、ドイツ) およびペルオキシダーゼ結合抗マウス抗体 (GE Healthcare UK) を使用して膜を再プローブしました。 各レーンのビテロゲニン (YP170 および YP115) および CML バンドの密度を、それぞれのレーンのアクチン バンドの密度に対して正規化しました。 バンド密度は、ImageQuant TL ソフトウェア (GE Healthcare) を使用して分析しました。 各アッセイを 2 回実行しました。
in vivoでのAGEsに対するリボースとリファンピシンの影響
終了した産卵(生後7日目)。 リボースの影響を評価するために、生存アッセイを実行し、自己蛍光を測定しました。 虫がいたワームピッカーで優しく触れても反応しなかった場合、死んだものとみなされました。 プレートの壁に付着した結果死亡した虫は分析に含まれず、検閲されました。 別の実験では、MGM 50μM含有(最後の濃度)リファンピシン(に溶解)DMSO)を使用した。 各アッセイを 2 回繰り返しました。
古い線虫に特有のタンパク質の同定
20 mM (2 倍モル過剰の DTT の存在下); そのときの混合物は暗所、室温で 30 分間インキュベートして、アルキル化反応を進行させます。 50 mM AmBic 中のトリプシンを各溶液と 1:50 (トリプシン: タンパク質濃度) で混合しました。 サンプルを少なくとも 4 時間または一晩 37 度で振盪しながら消化しました。 続く遠心分離し、TFA および ACN を加えて収量を得た。最後の0.5の濃度–体積あたり 1.0 パーセントの TFA と 2 パーセントの ACN。 サンプルを 60 度で 2 時間振盪しました。 22,200×遠心後g 5分間、上清はオートサンプラーバイアルにピペットで移します。 タンパク質は事前にトリプシンで消化されていますESI-Q-TOF システム (Impact II Bruker Daltonics) と組み合わせた Ultimate3000RSnanoLC システム (Thermo Fisher Scientific) を使用した逆相液体クロマトグラフィーによる分析まで。 酵母のアルコール脱水素酵素(ADH1_YEAST) タンパク質が内部標準としてサンプルに添加されました。スパイクを実行して、約 50 fmol の量のコラムに標準装備。
in vitro 糖化後の自己蛍光
PBS 溶液中のビテロゲニン ({{0}}.053 μM) は、Biosense Laboratories AS (ベルゲン、ノルウェー) から購入しました。 伸長因子溶液 (1.17 μM) は、Abnova Corporation (台湾、台北市) から購入しました。 これらの溶液を、0.1 mM リボースを用いて 37 度で 23 日間糖化しました。 リボflflアビンは Sigma (東京、日本) から購入し、0.1 mM で PBS に溶解しました。 各溶液を同じ条件下で蛍光分光光度法により測定した。
免疫蛍光老若男女の虫によってOP50 を与えた年齢同調 CB1003 を 25 度でインキュベートしました。 生後3日目と13-日目の成体をブアンで透過処理した'チューブ固定プロトコル43.
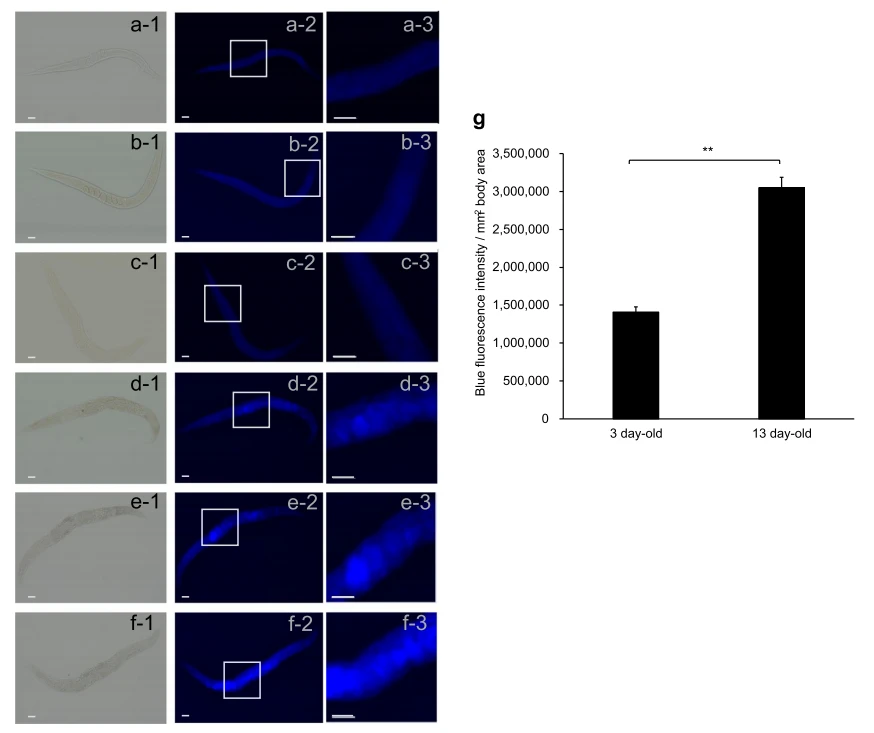
図 7 3- 日齢および 13- 日齢の kynu-1 変異体の蛍光画像。 交流生後3日目の虫とd–f 13- 日経過したワーム、列 1 に生の画像。死による影響の可能性を除外するためフロリダ虫の2日前から始まる蛍光' 死、ミュータントキヌ-1使われた。 列 2 と列 3 の画像には自己蛍光が見られます。列 3 の写真は、列 2 の画像の (長方形で示された) 領域を拡大したものです。 老化した線虫 (13- 日齢) 自動蛍光したシグニフィフィ若い虫(3-日齢)よりわずかに高い。 各スケール バーは 50 を示しますμm. g 定量化青の蛍光ImageJ および ImageQuant TL ソフトウェアを使用します。 各バーは平均値を表します。フロリダ1mmあたりの蛍光強度2 9匹の虫。 ** は統計的に有意であることを示しますフィフィ生後3-日と13-日のワームの違いはわかりませんp 値 < 0.01。 エラーバーはSEを表します。
1 時間後、10% ヤギ血清を含む抗体緩衝液でブロック(コスモバイオ、東京、日本)一晩中4度。 一次抗体は、マウスモノクローナル抗 AGE (抗 CML) 抗体 (クローン番号 6D12; 1:125) および抗ペントシジン抗体 (クローン番号 PEN-12、Trans Genic; 1:5) で構成されました。 0)。 二次抗体は、Alexa Fluor 555- 結合ヤギ抗マウス抗体 (Abcam、英国ケンブリッジ、1:100) から構成されていました。 すべての抗体の希釈は、0.5 パーセントの BSA を含む抗体バッファーを使用して実行されました。 サンプルは、VECTASHIELD 退色防止封入剤 (Vector Laboratories、バーリンゲーム、カリフォルニア州、米国) を使用してスライドガラスに封入されました。
蛍光顕微鏡検査
統計分析
平均余命の相関関係はスピアマンを使用して計算されました。'sランク相関係数。 in vitro 糖化後の自己蛍光レベルは、二因子要因分散分析とシェッフェを使用して比較されました。's F テスト。 のインビトロ糖化後の ELISA 値は、単一因子 ANOVA と多重比較のダネット検定を使用して比較されました。 線虫の生存カプランによって計算されました–マイヤー法および生存率の差は、ログランク検定を使用して有意性について検定されました。 リファンピシン治療および老化後の自己蛍光値ダフ-2とキヌ-1Student を使用して変異体をそれぞれ比較しました's t 検定、反復測定 2 因子分散分析、およびマン–ホイットニーU テスト。 N2 またはキヌ-1ノンパラメトリック Steel を使用して変異体を比較しました。–ドワス法。 自家蛍光顕微鏡による密度は、Student を使用して比較されました。's t検定。 重要性が観察された場合、データは機密扱いでしたフィフィ* として編集p < 0.05 and **p < 0.01. All 統計分析は、次の機能を追加した Microsoft Excel を使用して実行されました。アドインソフトウェアプラスStatcel 3 (OMS、東京、日本) および Windows 用 JSTAT(南江堂、東京、日本)。
レポートの概要
研究デザインの詳細については、Nature Research を参照してください。この記事にリンクされているレポートの概要。
データの可用性
現在の研究中に生成されたデータセットは、対応するサイトから入手できます。合理的な要請に応じて著者に依頼します。
参考文献
22. Mendler, M.、Schlotterer, A.、Morcos, M. & Nawroth, PP 糖尿病性多発神経障害と長寿の理解: 線虫から何を学べるかCae Norhabditis elegans? 経験値 クリン。 内分泌。 糖尿病 120, 182–183 (2012).
さらに質問してください:
メール:wallence.suen@wecistanche.com Whatsapp プラス 86 15292862950


