

カンクサはアポトーシスとグリア細胞由来の神経栄養因子の調節を通じてドーパミン作動性ニューロンを保護する: in vivo および in vitro-Ⅱ
Aug 02, 2024
行動テスト
水泳テスト (Zhu et al., 2014)
マウスの体の動きの調整を水泳テストによって測定しました。マウスを10cmの水を入れた水槽(高さ25cm、直径10cm)に個別に入れ、静かな環境で5分間の静止時間を記録する試験を行った。
オープンフィールドテスト (Kawai et al., 1998)
運動活動はオープンフィールドテストを使用して測定されました。マウスは静かで薄暗い環境でテストされ、底に6cm×6cmの分離グリッドを備えた30cm×30cm×15cmの透明なアクリル容器に個別に入れられました。マウスを環境に適応させるために 10 分間与え、その後、個々のマウスのグリッド数の歩行と立ち上がり頻度を連続 5 回測定して平均値を取得しました。

性機能を改善するための天然シスタンケ チューブローサ PHGS75% ECH 30% ACT 12%
脳組織のサンプリング
組織サンプリングの前に、マウスには水を自由に摂取できる状態で餌を与え、連続 14 日間薬物介入を受けました。各グループから 4 匹のマウスを選択し、すぐに首を切り落としました。各動物からSN(ブレグマ: -2.75 mm -2.92 mm)を単離し、氷上に置いた。脳組織を 0.9% 氷冷塩化ナトリウム溶液ですすぎ、血液を除去し、ろ紙上で乾燥させた後、-80°C で保存しました。各グループから 4 匹のマウスに腹腔内麻酔をかけ、胸を開いた。次いで、各動物の左心室に注入針を挿入した。循環系の血液を除去するために、右心耳を切断し、継続的な灌流を確保するために肝臓が青くなるまで動物に 4°C の生理食塩水を注入しました。右心房の流出物が透明になったら、各動物に 4% パラホルムアルデヒド固定液を灌流しました。灌流後、各動物の脳組織を注意深く解剖し、4% パラホルムアルデヒドで 24 時間後固定しました。次いで、固定された脳組織を流水ですすぎ、段階的な一連のエタノール溶液中で脱水し、キシレン溶液中で透明にした。続いてパラフィン浸漬と包埋を行いました。
HPLCで測定したDA量の変化
各グループからのナノ粉末SNを、0.9%塩化ナトリウム溶液(1:9比)を含む氷浴中に置いた。脳組織を超音波細胞破砕機を用いてホモジナイズし、4℃、1200 rpmで20分間遠心分離して上清を得た。 HPLC には、カラム温度 30°C の Hypersil AA-ODS カラム (2.1 mm × 200 mm、5 µm) を使用しました。蛍光検出は、280 nm λex および 340 nm λem で実行されました。注入量は10μLでした。
免疫組織化学によって検出されるTH、GDNF、GFR 1、およびRetの発現
個々の脳組織のパラフィン切片 (厚さ 5 μm) を各動物から分離し、平らにしてスライドガラスに付着させるために 40°C の温水浴に置きました。すべての組織スライドを 60°C のオーブンで 3 ~ 6 時間インキュベートした後、キシレン脱蝋、勾配エタノール脱水、およびクエン酸緩衝液中でのインキュベートと電子レンジで 20 分間加熱することによる抗原賦活化を行いました。次に、組織スライドを 3% H2O2 溶液中で室温で 10 分間インキュベートしました。 PBSで3回洗浄した後、組織スライドを密閉チャンバー内で正常血清とともに室温で20分間インキュベートした。免疫組織化学的染色は、製造業者の指示に従って実施した。 Motic Med 6.0 画像分析装置を使用して、陽性染色された細胞の積分光学濃度の値を計算しました。
マウスの脳組織におけるウェスタンブロット分析
この研究では、チロシンヒドロキシラーゼ (TH)、GDNF、GFR 1、Ret、Bcl2、および Bax のタンパク質発現を評価しました。各グループの脳溶解物を氷上で 3{{10}} 分間ホモジナイズし、続いて 20、000 rpm、4 °C で低温遠心分離しました。上清を回収するのに 5 分。タンパク質サンプルは、上記のように 10% SDS-PAGE ゲルを使用して定圧下で分離されました。一次抗体濃度: TH 0.15 mg/ml、GDNF 0.5 mg/ml、GFR 1 0.8 mg/ml、Ret 0.63 mg/ml、Bcl-2 0.34 mg/ml、Bax 0.11 mg/ml。手順は上記と同じでした。

アンチエイジング、抗アルツハイマー病のための天然シスタンケ チューブローサ PHGS75% ECH 30% ACT 12%
統計分析
この研究では、データの処理と分析に SPSS 20.0 統計ソフトウェアを使用しました。パラメータ値は平均 ± 標準偏差 ( ̄x ± S) として表されました。 ANOVA は単一因子データ分析に使用されました。 LSD または Games-Howell テストを使用してグループを比較しました。 P< 0.05 (or P < 0.01) was considered as a statistically significant difference.
結果
C. tubulosa ナノパウダーの有効成分
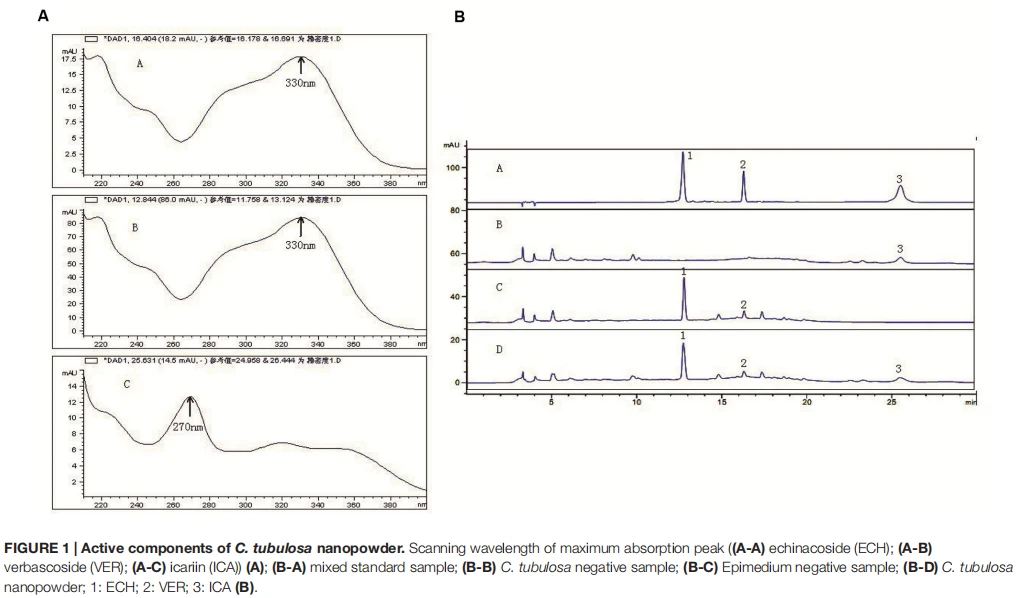
200 ~ 400 nm のスキャン範囲では、C. tubulosa の ECH と 330 nm の VER に最大吸収ピークがあり、20 分以内に現れました。 ICA は 270 nm に最大吸収ピークを持ち、20 分後に現れました (図 1A)。結果は、陰性サンプルが検出を妨げないことを示しました (図 1B)。サンプルとコントロールには同じクロマトグラフィーのピークがありましたが、陰性サンプルには何もありませんでした。これは、サンプル中の他の成分が測定対象の成分に干渉していないことを示しています。さらに、3 つの成分と隣接するピークは分離ベースラインに達する可能性があり、分離度は 1.5 を超えていました。


C. tubulosa ナノパウダーは MES23.5 細胞における MPP を減少させました+ -
MES23.5 細胞の生存率は、MPP+ の濃度が増加すると大幅に減少しました。図 2F は、さまざまな濃度の MPP+ の顕著な細胞毒性を示しています。
C. tubulosa ナノパウダーは、MPP+- によって誘発される細胞毒性を軽減し、MES23.5 細胞の生存率を高めました。図 2G は、10 ~ 250 μg/mL の C. tubulosa ナノパウダーが MPP+- 処理 MES23.5 細胞に対して用量依存的な保護効果を発揮したことを示しています。
C. tubulosa ナノパウダーの細胞形態学的効果
正常な MES23.5 細胞は良好な細胞接着性を持ち、明確な細胞境界とシナプスを備えた紡錘形でした。 MPP+- で損傷した MES23.5 細胞は、細胞の接着と収縮が弱く、多くはシナプスが収縮して培地中に浮遊していました。これらの細胞は凝集し、縮んで丸くなり、内部に空胞があり、核は崩壊または崩壊していました。異なる用量の C. tubulosa ナノパウダーは、ビヒクルグループの細胞接着とシナプスクリアランスを改善することにより、MES23.5 細胞の細胞形態をさまざまな程度で改善しました。高用量の C. tubulosa 処理グループの MES23.5 細胞は、正常な対照グループと同様の形態を示しました (図 2A ~ E)。
細胞におけるTH発現およびアポトーシスに対するC. tubulosaナノパウダーの影響
図 3 は、ビヒクルグループにおける TH タンパク質発現の大幅な減少を示しています。 TH タンパク質の発現は、異なる用量の C. tubulosa で治療したグループでは異なる増加を示しました。しかし、LSD テストでは、3 つの治療グループ間に有意差がないことが示されました。
図 4 は、フローサイトメトリーを使用したアポトーシス評価の結果を示しています。ビヒクルグループにおけるアポトーシスの率は、他のグループよりも有意に高かった。異なる用量のC. tubulosaナノ粉末で処理した細胞は、ビヒクル群と比較して、アポトーシス率の異なる程度の低下を示した。中用量および高用量のC. tubulosa処理グループの細胞は、他のC. tubulosa処理グループと比較してアポトーシス率が最も顕著に改善されました。 LSDテストでは、2つの治療群間に有意差はなかったが、低用量群間にも有意差があったことが示された。
細胞におけるBcl2/Baxタンパク質発現に対するC. tubulosaナノパウダーの影響
図5は、ビヒクル群の細胞におけるBcl2タンパク質の発現が、正常な対照群と比較して有意に低かったことを示す。対照的に、ビヒクル群の細胞におけるBaxタンパク質の発現は、正常な対照群よりも有意に高かった。 C. tubulosa 処理グループは、MPP+- 処理 MES23.5 細胞において Bcl2 タンパク質発現の増加と Bax タンパク質発現の減少を示しました。 3 つの治療グループ間では、LSD テストに有意な差がありました。これらの効果は用量依存性でした。
行動テスト
水泳テストの結果は、溶媒グループのマウスの静止時間が比較的長く、時間の経過とともに増加することを示唆しました。 14日目では、ビヒクル群のマウスは、正常な対照群のマウスよりも有意に長い静止期間を有していた。マウスの静止時間


低用量のC. チューブロサ治療群はビヒクル群のマウスと有意な差はなかった。しかし、高用量のC. tubulosa治療群のマウスの静止持続時間は、溶媒群のマウスの静止持続時間よりも有意に短かった。
オープンフィールド試験の結果は、マウスにおけるMPTP誘発損傷の後、立ち上げ頻度によって示されるように、ビヒクル群のマウスは自発的活動能力の顕著な低下を示したことを示唆している。 14-日間の投与後C. tubulosa ナノパウダー、中用量および高用量の治療グループのマウスは、ビヒクルグループのマウスと比較して、有意に高い立ち上がり頻度を示しました(図6A、B)。


マウスの DA 含量に対する C. tubulosa ナノパウダーの影響
SN の DA 含量の変化は HPLC によって測定されました。ビヒクル群の脳内のDA含有量が大幅に減少していることが判明した。低用量 C. tubulosa 治療グループの PD マウスの脳内の DA 含有量は、ビヒクルグループのマウスと有意な差はありませんでした。しかし、C. tubulosa の治療は、PDマウスの脳内のDAレベルを用量依存的に増加させました。高用量のC. tubulosaで治療したPDマウスの脳は、ビヒクル群のマウスの脳よりも有意に高いDA含量を有していた(図6C)。
マウスのTH発現に対するC. tubulosaナノパウダーの影響
MPTP誘発PDマウスのSNにおけるTH陽性細胞の数およびTHタンパク質発現レベルは、対照群のマウスと比較して低かった。 C. tubulosa 治療後、MPTP 誘発 PD マウスの SN における TH 陽性細胞の数と TH タンパク質発現レベルが増加し、高用量 C. tubulosa 治療群と溶媒群の間には有意な差が見られました。 LSDテストによる。そして、3 つの治療グループ間には有意な差がありました (図 7)。

マウスにおけるGDNFとその受容体、GFR 1およびRetのタンパク質発現に対するC. tubulosaナノパウダーの影響
陽性染色された細胞における GDNF とその受容体である GFR 1 および Ret のタンパク質発現を、免疫組織化学を使用して評価しました。ウエスタンブロット分析を使用して、異なるマウスグループのSNにおけるタンパク質発現レベルを評価しました。 2 つの検出方法を使用した場合、異なるグループの結果は同様でした。ビヒクル群のマウスのSNにおける陽性染色細胞におけるGDNFおよびその受容体タンパク質、GFR1およびRetの発現は、正常対照群のマウスよりも有意に低かった。異なる用量の C. tubulosa 処理により、GDNF 陽性細胞、GFR 1- 陽性細胞、および Ret 陽性細胞の数が増加しました (図 8A ~ S)。
ビヒクル群のマウスのSNにおけるGDNF、GFR1、およびRetのタンパク質発現は、対照群のマウスよりも有意に低かった。治療濃度の増加C. チューブロサ ナノパワーこれらのタンパク質の発現を大幅に強化しました。高用量の C. tubulosa 治療グループのマウスの SN における GDNF、GFR 1、および Ret のタンパク質発現は、ビヒクルグループのマウスよりも有意に高かった (P< 0.01; Figures 8T, U).
マウスにおけるBcl2/Baxのタンパク質発現に対するC. tubulosaナノパウダーの影響
ビヒクル群のマウスの SN では、Bcl2 タンパク質の発現が大幅に減少し、Bax タンパク質の発現が大幅に増強されました (P< 0.01) compared with the mice in the normal control group. High-dose C. tubulosa treatment significantly increased Bcl2 protein expression and significantly reduced Bax protein expression in the brains of the vehicle mice (P < 0.01; Figure 9). LSD test showed there was no significant difference between the middle-dose and high-dose groups but a significant difference between the low-dose group.
議論
PDとアポトーシス
PD は神経変性疾患です。 Zhangらによると、 (2005) によると、有病率は中国の 55 歳以上の人口で 10.7%、65 歳以上で 1.67% です。世界的な高齢化の加速に伴い PD 患者の数は年々増加しており、患者の家族に大きな経済的負担を与えています。そして社会全体。脳では、ドーパミン作動性ニューロンが主に DA の合成と分泌に関与しています。それらは中枢神経系に広く分布しており、主にSN(80%)に位置しています。 TH は、DA 合成の重要な律速酵素です。したがって、TH 活性の阻害により DA 合成が減少します (Huot および Parent、2007)。 PD の主な病理学的および生化学的変化は、SN におけるドーパミン作動性ニューロンのアポトーシス、黒質線条体 DA の大幅な減少、およびドーパミン作動性ニューロンにおけるレビー小体の形成です (Dexter and Jenner、2013)。 PDの病因には、関連する遺伝的要因、環境要因、および神経系の老化が関与している(Allam et al., 2005)。 PDの病因は現代医学では依然として不明である。 1960 年代後半以来、レボドパ補充療法は PD の治療に使用され成功しており、PD 治療における大きな転換点として認識されています。しかし、この療法の長期適用は副作用を引き起こし、この療法はPDの根本的な原因を治療するものではありません(Del Sorbo and Albanese、2008)。したがって、ドーパミン作動性ニューロンの保護をターゲットとした新薬や治療法の積極的な研究がPDの治療には極めて重要です。
以前の研究では、ターミナル デオキシヌクレオチジル トランスフェラーゼ媒介 dUTP ニックエンド標識の適用により、PD 患者の SN におけるドーパミン作動性ニューロンの 0.6% ~ 4.8% がアポトーシスを示すことが示されました (Mochizuki et al., 1996)。電子顕微鏡検査により、ドーパミン作動性細胞における色彩凝縮およびアポトーシス小体を含むアポトーシスの特徴が示された(Anglade et al., 1997)。トンプキンスら。 ( 1997 ) PD、AD、およびびまん性レビー小体病 (DLBD) の患者からの脳組織解剖の超微細構造分析を実施しました。彼らは、PDおよびDLBD患者のSNの緻密層にアポトーシス小体を発見し、PDおよび関連疾患における神経細胞のアポトーシスの決定的な証拠を提供した。したがって、ドーパミン作動性ニューロンにおけるアポトーシスの減少または抑制は、PD治療の基本です。

以前の研究では、MPTP が PD 様症状を誘発することが示されています。 MPTP は血液脳関門を通過し、星状細胞内の B 型モノアミンオキシダーゼによって代謝されます。その後、有毒な MPP+ に変換され、DA トランスポーターのタンパク質摂取を通じてドーパミン作動性ニューロンのミトコンドリアに蓄積します。したがって、ミトコンドリア呼吸鎖の複合体 I 活性と ATP 合成を阻害する過剰な酸素フリーラジカルが生成されます。これらの現象はフリーラジカルの形成と酸化ストレス反応をさらに促進し、最終的にはドーパミン作動性ニューロンの変性と死につながります。したがって、この研究では、MPP+を使用してMES23.5ドーパミン作動性ニューロンのin vitroビヒクルを確立し、MPTPを使用して相互検証のためにビヒクルマウスを誘導しました。 MTT アッセイの結果によると、MPP+ は MES23.5 細胞の生存率を大幅に低下させ、MPP+ がドーパミン作動性ニューロンに対して細胞傷害性であることを示唆しています。この結果は、C. tubulosa が抗アポトーシスタンパク質の発現を効果的に増強し、MPP+- 誘導性アポトーシスの増加を阻害することも示しました。
PDとGDNF
GDNF は神経栄養因子であり、Lin らによって初めて単離されました。 (1993年)。リンら。 ( 1993 ) は、GDNF がラットの中脳のドーパミン作動性ニューロンに特異的な栄養効果を及ぼすことも示しました。 GDNF、ニュールツリン (NTN)、ペルセフィン (PSP)、およびアルテミン (ART) が GDNF ファミリーを構成します。それらは構造的に類似しており、機能的に関連する分泌タンパク質である(Kotzbauer et al., 1996; Baloh et al., 1998; Milbrandt et al., 1998; Woodbury et al., 1998)。

GDNF 受容体は 2 つの構成要素から構成されます。最初の成分である GFR は、グリコシルホスファチジルイノシトール (GPI) の外膜に固定され、コネキシンの表面に固定されています。 2 番目の成分は Ret タンパク質です。研究により、GFR には 4 つの異なるタイプがあることが示されています: GFR 1、GFR 2、GFR 3、および GFR 4。GFR 1 は GDNF の高親和性受容体です (Onochie et al., 2000; Chen et al., 2001; Lindahl)ら、2001)。 Ret タンパク質は GDNF の機能的な受容体です。 GDNF のホモ二量体分子は GFR 1 に直接結合して複合体を形成し、Ret と相互作用して、Ret の二量体化と活性化を引き起こします。 Ret の自己リン酸化により、Ret はいくつかの一般的な TH シグナル伝達経路を活性化します。 Ret タンパク質が存在しない場合、GDNF は、その受容体タンパク質である GFR 1 を介した C-fos の mRNA 発現と機能活性に加えて、MAPK、PI{10}}、および PLC- のタンパク質リン酸化を引き起こします (He et al., 2008)。
研究は、GDNFがドーパミン作動性ニューロンに対して最も強い保護効果を有することを実証した(Rangasamy et al., 2010; Campos et al., 2012)。ドーパミン作動性ニューロンの損傷を誘発するためにMPTPと6-ヒドロキシドーパミン(6-OHDA)を使用するビヒクルでは、GDNFはアポトーシスを減少させ、軸索成長を促進して幹細胞分化を誘導することによってドーパミン作動性ニューロンを保護します(Lucas et al.、2012;リトレルら、2013)。リンら。 ( 1993 ) GDNF がドーパミン作動性ニューロンの生存、分化、軸索成長を特異的に促進し、ニューロンにおける DA の取り込みを促進することを示しました。この研究では、GDNFが急性毒性を防ぐだけでなく、ドーパミン作動性ニューロンにおけるMPP+または6-OHDAの長期毒性も軽減し、さらにストレスを受けた細胞や損傷を受けた細胞の細胞死を防ぐことも示した(Yu et al., 2010)。さらに、GDNFは、中脳におけるドーパミン作動性ニューロンへの神経幹細胞の増殖および分化を促進し(Lindsay、1995)、ドーパミン作動性ニューロンを逆行性変性から救い出した(Hong-Juan et al.、2011)。

研究により、SNにおけるGDNF発現が動物ビヒクルにおいて有意に減少することが示されている(Yang et al., 2010)。これは、それが PD ラットの病因のメカニズムの 1 つである可能性を示唆しています。 MPTP 誘発ビヒクル動物の側脳室または線条体に 5 ~ 15 μg/日の GDNF を連続 3 か月間注射すると、ビヒクル動物のドーパミン作動系の黒質線条体修復が促進されました (Grondin et al., 2002)。動物ビヒクルにおけるPDに対するGDNF治療の研究では、SN、尾状核、側脳室などのさまざまな脳領域にGDNFを脳内注射すると、運動活動の低下、筋硬直、および運動活動の低下など、PD動物モデルに関連する運動障害が改善されることが示されています。振戦 (Grondin et al., 2002)。ただし、GDNF は血液脳関門を直接通過できません。したがって、GDNF の脳への局所注射は、臨床応用においてかなりのリスクと困難を伴います。制御放出マイクロスフェア、徐放カプセル、およびウイルス遺伝子を介して外因性GDNFを導入する応用は、依然として研究中である(Liang et al., 2010; Yang et al., 2010; Qiao et al., 2012)。外因性 GDNF を脳に導入するさまざまな技術には限界があるため、内因性 GDNF の放出を促進する神経保護剤は臨床応用にとって重要です。
PDとC. チューブロサナノパウダー
PDは中年成人および高齢者に多く見られます。 TCM の理論では、PD は主に脳に位置し、主に生命エネルギーと血液の不足に加え、肝臓と腎臓の欠乏が原因であると考えられています。したがって、この理論によれば、PD 治療は腎臓と骨髄の活性化に重点を置く必要があります。ヤンら。 (2010)らは、無作為化、二重盲検、プラセボ対照臨床試験を実施し、Madopar と腎臓を強化するレシピを使用した併用療法が PD 患者の運動機能障害を軽減することを発見しました。治療結果は、マドパーを使用した単一の治療よりも良好でした。 PDにおけるTCM単独療法または化合物処方の治療効果は、PD動物モデルおよび臨床応用で確認されています。腎臓を強化し、血液循環を促進するための TCM 応用により、マドパーを使用した PD の単独療法の投与量が減少しました。いくつかの研究では、TCM が PD の症状を改善し、ドーパミン作動性ニューロンを保護することが示唆されており、これは内因性 GDNF 発現の促進と密接に関連している可能性があります (ホン・ジュアン他、2011年。喬ほか、2012).
この研究で使用された腎臓を強化する化合物は、C. チューブロサナノパウダーが含まれていますシスタンケ、イカリソウ、 そしてポリゴナティ根茎。最新の研究では、次の化学組成が示唆されています。シスタンケECH は、MPTP 誘発 PD マウスの SN のドーパミン作動性ニューロンを保護し、DA および DA トランスポーターの減少を阻害します (趙ほか、2010)。さらに、6-OHDA による DA の減少を防ぎ、線条体のドーパミン作動性ニューロンを保護します(チェン他、2007)。イカリソウはカスパーゼ-3の活性化を阻害し、神経保護の役割を果たします(リュー他、2011)。イカリソウのフラボノイドは、神経幹細胞の増殖と分化を効果的に促進します (ヤオら、2010).
この研究では、C. チューブロサナノパウダーはMPPの増加に拮抗しました+-用量依存的にアポトーシスを誘導。 TH発現を大幅に改善しました。インビトロビヒクルであり、ドーパミン作動性ニューロンにおいて顕著な抗アポトーシス効果がありました。 MPTP 誘発ビヒクルマウスは行動障害を示し、PD の典型的な病理学的特徴である中脳組織における TH 発現と DA レベルの大幅な低下を示しました。異なる用量のC. チューブロサナノパウダーは静止時間を短縮し、自律活動を強化し、行動障害を改善し、脳内の DA レベルを上昇させ、車両内の TH 発現を増加させました。これらの結果は、次のことを示唆しています。C. チューブロサナノパウダーはドーパミン作動性ニューロンに保護効果を発揮し、それによって車両の行動障害を改善しました。異なる用量のC. チューブロサナノパウダーは、ビークルマウスの脳における GDNF タンパク質とその受容体タンパク質の発現を増加させました。高用量C. チューブロサ治療により、Bcl2 発現が有意に上方制御され、Bax 発現が減少したことが示唆されました。C. チューブロサナノパウダーMPTP 損傷マウスの脳における GDNF の発現と分泌を促進する可能性があります。さらに、GDNF はドーパミン作動性ニューロンに神経保護効果を発揮し、GDNF の神経栄養性サポートの役割を通じてニューロンのアポトーシスを最小限に抑える可能性があります。
この研究は次のことを実証しましたC. チューブロサナノパウダーは、両方の国のドーパミン作動性ニューロンに保護効果を発揮しました。インビトロそして生体内TH 発現を増加させて DA 含有量を改善しました。また、MPTP 誘発ビヒクルマウスの行動障害を改善し、SN における GDNF とその受容体タンパク質のタンパク質発現を制御し、PD マウスでは抗アポトーシス効果を示しました。臨床効果の根底にあるメカニズムC. チューブロサPDにおけるナノパウダーは、脳内の内因性GDNFの含有量を増加させ、それによってドーパミン作動性ニューロンへの損傷を軽減することに関与している可能性があります。

性機能改善のための天然シスタンケ チューブローサ PHGS75% ECH 30% ACT 12


