

ホモ接合性Dab1-//は、マウスの腎臓と尿路の常染色体劣性先天性異常の潜在的な新規原因です。
Feb 28, 2022
序章
Dab1遺伝子の突然変異の自発的獲得によって得られたヨタリ突然変異マウスは、リーリン(リーリン//)マウスと非常によく似た中枢神経系の組織学的異常を示し[1,2]、リーリンとDAB1が同じシグナル伝達経路[1–4]。 リーリン/DAB1経路の異常は、さまざまな精神障害に関連していると報告されています[5–7]。 興味深いことに、中枢神経系に加えて、DAB1とリーリンタンパク質の存在も末梢神経系といくつかの神経外組織で確認されています。 DAB1の存在は、マウスの有足細胞[8]およびヒトの胎児で発見されています。腎臓[9]リーリンの発現は、マウスとヒトの胎児の発育中、および成体マウスの血管に沿ったいくつかの内皮細胞で報告されています[9–11]。 正規のリーリン/DAB1経路は、NOTCH2受容体を含む別個の下流タンパク質を誘発する可能性があります。これは、細胞の運命の決定と分化において重要な役割を果たします。肝臓開発[12–14]。 NOTCH2受容体は近位尿細管と有足細胞を形成するために必要です[13]が、ネフロンの成熟が達成されると、この経路はほとんど沈黙します[15]。 急性の状態で腎臓病,NOTCH2の発現の増加は再生に寄与する可能性がありますが、持続的な発現は間質性線維症および糸球体硬化症と因果関係があります[15]。 NOTCHシグナル伝達のダウンレギュレーションは、オートファジーを大幅に減少させ、発生中に有足細胞の分化障害を引き起こす可能性があります[16]。
その結果、機能不全の有足細胞は、糸球体疾患、特にヒト特発性ネフローゼ症候群[17,18]および微小変化群ネフローゼ症候群(MCNS)[19]において重要な役割を果たします。 したがって、オートファジーは通常の生理学的条件下で細胞の恒常性を維持しますが、病的状態ではオートファジーによる死に進行する可能性があります[20]。 広く使用されているオートファジーバイオマーカーは、オートファゴソーム膜の構造タンパク質であるLC3Bです[21]。 オートファジーとアポトーシスの間の複雑なクロストークも、細胞の微小環境への応答として恒常性バランスの維持に貢献します。 アポトーシスイベントの数が増加することはよく知られています肝臓発達[22]し、成熟が終わると、以下の条件を除いて大幅に減少します。腎障害[23]。 紛れもなく、アポトーシスはいくつかの経路の相互作用によって調節される複雑なメカニズムですが、ほとんどの場合、アポトーシス検出に最も頻繁に使用されるマーカーの1つであるカスパーゼ3(CASP3)の活性化で終了します[23]。
このレポートでは、Dab1遺伝子の機能的サイレンシングがどのように影響するかを分析することを目的としました肝臓出生後のマウスにおけるリーリン、NOTCH2、LC3B、および切断されたCASP3タンパク質の形態と発現および局在腎臓。 これらのタンパク質は出生後のマウスで発現していると考えられます肝臓、そしてそれらの機能的相互作用はそれらの構造と機能の維持に貢献します。 さらに、DAB1の存在が胎児の人間の間に確認されたので肝臓開発[9]、その不活性化は、先天性異常の広範囲の障害を引き起こす可能性があると推定することができます肝臓および尿路(CAKUT)。
キーワード:よたり; 腎臓機能; 出生後の腎臓の発達; 免疫蛍光染色; 透過電子顕微鏡法

CISTANCHEは腎臓/腎機能を改善します
材料および方法
サンプルコレクションDab1 nullの従来の変異体として、Howell et al。によって以前に説明されたyotari(Dab1 /)マウスを使用しました。 [24]。 マウスの遺伝子型決定に使用したPCRプライマーはヨタリ:GCC CTTCAGCATCACCATGCTおよびCAGTGAGTACATATTGTGTGAGTTCC、野生型のDab1遺伝子座:GCCCTTCAGCATCACCATGCTおよびCCTTGTTTCTTTGCTTTAA-GGCTGTでした[5]。 C57BL / 6 Nマウスを飼育し、標準のポリカーボネートケージ(各遺伝子型の少なくとも1つを含む)にグループで収容し、12時間の照明を備えた温度制御(23±2°C)の部屋で餌と水を自由に摂取できるようにしました。ダークサイクル。 生後4、11、および14日目(P4、P11、およびP14)に、マウスをペントバルビタールで深く麻酔し、リン酸緩衝生理食塩水(PBS、pH 7.2)および4%パラホルムアルデヒド(PFA)で10分間経心的に灌流しました。 )0.1MPBS中。腎臓従来の組織学的分析(ヘマトキシリン-エオシン(H&E)、免疫組織化学的および免疫蛍光染色)および2%PFAと2.5%グルタルアルデヒド(GA)混合物で、0 .1 M PBS中の4%PFAで一晩除去し、固定しました。電子顕微鏡検査用。 固定後、以前に説明したように[25,26]、組織をさらに組織学的検査のために準備しました。
免疫蛍光および免疫ペルオキシダーゼ染色脱パラフィンおよび再水和後、切片を水蒸し器内の0。01 Mクエン酸緩衝液(pH 6.0)で2 0分間加熱し、その後、室温まで冷却しました。 ブロッキングバッファー(ab 64226、Abcam、ケンブリッジ、英国)を30分間適用して、不特定の染色を排除しました。 次に、切片を一次抗体とともに湿度チャンバー内で一晩インキュベートしました(表1)。 PBSで洗浄した後、二次抗体(表1)を1時間適用し、PBSで再度洗浄しました。 次に、核を4060 -ジアミジノ-2-フェニルインドール(DAPI)で2分間染色し、PBSで洗浄し、カバースリップをかけました。 各一次抗体が対応するペプチドとともに使用され、それらの組み合わせが切片に適用されるように、事前吸着試験を実施しました。 結果は抗体染色を示さなかった。 さらに、二次抗体の非特異的結合のレベルを決定するために一次抗体を省略した対照を実施した。

免疫ペルオキシダーゼ染色では、ウサギポリクローナル抗CASP3(1:1 0 0希釈、ab13847、Abcam、ケンブリッジ、英国)を、切片を0.1で処理した後、湿度チャンバー内で1時間一次抗体として適用しました。パーセントH2O2。 PBSで洗浄した後、リンクとストレプトアビジンペルオキシダーゼを使用して、それぞれ15分間(DakoCytomation、CA 93013 USA、LOT 03477)およびジアミノベンジジン(Dako、CA 93013 USA、LOT 10051369)を使用して二次検出を行い、バックグラウンドの過剰染色を回避しました。 核をヘマトキシリンで染色し、水道水で10分間すすぎ、上昇する一連のエタノール溶液で短時間脱水し、カバースリップをかけた。
透過型電子顕微鏡(TEM)のための組織の準備0 .1 M PBS中の2%PFAと2.5%GAの混合物で2時間固定した後、サンプルをPBSで洗浄し、2%四酸化オスミウムの水溶液で2時間後固定しました。 すべてのサンプルをPBSで2回洗浄し、エタノールの昇順グレードで脱水し、Epon 812(TAAB Laboratories Equipment、Reading、UK)に埋め込みました。 連続切片(厚さ70 nm)をUltracut UCT超薄切片(Leica Microsystems、Wetzlar、Germany)で切断し、1%酢酸ウラニルとクエン酸鉛で染色しました。
データの取得と分析分析は、DP71デジタルカメラ(オリンパス)を備えた落射蛍光顕微鏡(オリンパスBX51、東京、日本)、80 kVで動作し、JEOLチャージで撮影されたJEM 1400透過型電子顕微鏡(JEOL、東京、日本)を使用して行われました。結合デバイス(CCD)カメラシステム(Advanced Microscopy Techniques、Danvers、MA、USA)、最後に明視野顕微鏡(BX40、Olympus、Tokyo、Japan)。 分析されたすべての画像は、ImageJソフトウェアとAdobe Photoshop(Adobe、米国カリフォルニア州サンノゼ)で処理されました。 調べたグループごとに、3〜4匹の動物を使用しました。 すべて収集腎臓厚さ5µmのセクションでカットされ、最大肝臓 length determined by using these samples was reported. Mean proximal convoluted tubules (PCT), distal convoluted tubules (DCT) and glomeruli diameters were determined by averaging 100 structure diameters per analyzed sample. As nephron segments have irregular shapes, we took the largest diameter of every examined segment as representative. The staining intensity was semiquantitatively evaluated at four degrees: the absence of any reactivity (( ), mild reactivity (+), moderate reactivity (++), and strong reactivity (+++) (Table 2). The number of DAB1, reelin, NOTCH2, LC3B, and cleaved CASP3 immunoreactive cells was counted and expressed as a percentage of total cells. For each sample, we analyzed twenty PCT, DCT, and G at ×40 objective magnifification. We averaged the number of positive cells per group. Any level of nuclear, cytoplasmic, or membrane staining was regarded as positive. Three investigators analyzed the images independently. Interrater agreement was tested with interclass correlation analysis, which yielded a coeffificient >0 .75、優れた一致を示します[27]。

統計分析野生型動物とヨタリ動物のPCT、DCT、Gの平均直径の違いを分析するために、両側t検定を実行しました。 直径は平均±標準偏差(SD)として表されました。 有意水準はp<0。05に設定されました。 双方向anova検定とそれに続くテューキーの多重比較検定を使用して、pct、dct、および糸球体の間の陽性細胞の割合の違いをすべての時点で調べました。="" 陽性細胞のパーセンテージは、平均±平均の標準誤差(sem)として表された。=""><0.05に設定されました。 分析は、graphpadソフトウェア(graphpad="" software、la="">
結果
ヘマトキシリン-エオシン染色(H&E)および腎臓径の測定の正中矢状断面のH&E染色腎臓調べたすべての時点で、小さなものが強調されています肝臓野生型と比較したヨタリマウスの表現型(図1a)。 4P平均で肝臓よたり動物の直径は約75μmより約55μmでした。 さらに、この違いは、成長が遅いため、後の時点で顕著でした。腎臓の漸進的な成長と比較してヨタリで腎臓野生型動物で。 全体の減少かどうかを判断するには肝臓サイズはネフロンセグメントサイズの減少によって引き起こされました。グループごとのPCT、DCT、およびGの直径を平均しました。 実際、野生型と比較して、ヨタリグループの平均直径G、PCT、およびDCTは減少しました(図1b、p <0 .05)。="">腎臓ヨタリ動物の骨盤伸展および14Pでわずかにびまん性に拡張したDCT。 糸球体成熟の基本的な構造とパターンは、調べた両方の動物グループで同じです。

TEM顕微鏡写真に基づく記述的組織学的分析顕微鏡写真について TEMによって得られた野生型マウスの糸球体は、通常は発達して認識できる、濾過バリアのすべての部分の典型的な外観を示しました(図2a)。 有足細胞、有足細胞の足突起および茎、糸球体基底膜、および有窓内皮を有する毛細血管内腔は、容易に区別できた(図2a)。 一方、ヨタリマウスの糸球体では、足突起の消失と濾過スリットの欠如を伴う進行性の有足細胞の損傷が観察されました(図2b–d)。 これらの超微細構造の変化は、すべてで観察されました腎臓検査され、検査された糸球体のほとんどが関与した。 ヨタリマウスのPCTまたはDCTには、野生型動物よりも異常は見られませんでした(図2e–h)。 PCTでは、細胞膜の不規則性と隣接する細胞との細胞のかみ合いのために、細胞界面の定義が不十分でした。 細胞質は豊富で、よく区別された核、細長いミトコンドリア、基底の折り畳み、および微絨毛の間に多くの管状のくぼみがあり、頂端膜に刷子縁を形成していました。 より高い倍率は、隣接する尿細管上皮細胞の刷子縁および密着結合を形成するための長い微絨毛を含むPCT上皮細胞の頂端表面を明らかにした(図2e、f)。 一方、DCT上皮細胞の頂端面には、短い微絨毛がほとんどなく、小胞が多数含まれていました(図2g、h)。

図2.野生型とヨタリの透過型電子顕微鏡(TEM)顕微鏡写真腎臓野生型動物の糸球体(a)は、毛細血管(C)の有窓内皮(E)、基底膜(BM)、有茎細胞(PE)を伴う有足細胞(P)、および線維濾過スリット(FS)を伴う正常に発達した線維濾過バリアを示しました。 )。 の中に腎臓ヨタリ動物の場合、茎の消失と濾過スリットの欠如に気付く可能性があります(アスタリスク、b–d)。 野生型動物(e–h)と比較して、ヨタリマウスの近位尿細管(PCT)または遠位尿細管(DCT)に異常は認められませんでした。 PCTでは、細胞質は豊富で、よく区別された核(N)、細長いミトコンドリア(M)、基底の折り畳み(BI)、および微絨毛の間に多くの管状の穴(TP)があり、刷子縁(BB)を形成していました。頂端膜(e、f)。 より高い倍率は、隣接する尿細管上皮細胞の管腔細胞境界間の刷子縁および密着結合(TJ)を形成するための長い微絨毛を含むPCT上皮細胞の頂端表面を明らかにした(e、f)。 一方、DCT上皮細胞の頂端面には、短い微絨毛がほとんどなく、小胞が多数含まれています(g、h)。 画像(a–d)と挿入図(e–h)のスケールバーは1 µmです。 画像のスケールバー(e–h)は2 µmです。
リーリンとDAB1のローカリゼーションと共ローカリゼーションリーリンは、観察されたすべての時点で、検査されたすべての動物の糸球体およびDCTで軽度から中程度の反応性(表2)で弱く発現しました(p<0。05、図3a)。 ヨタリマウスのpctでのみ、陽性細胞の割合が野生型動物よりも有意に高かった(p=""><0.05、図3a)。>


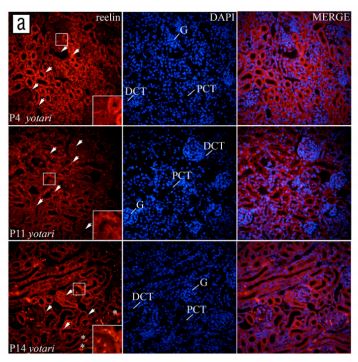

図4.出生後のヨタリの蛍光抗体法染色腎臓リーリンマーカー(a)と出生後の野生型の二重免疫蛍光染色腎臓DAB1とリーリンマーカー付き(b)。 (a、b)核DNA DAPI染色はDAB1と融合し、リーリン蛍光抗体法は並行して示されています(融合)。 観測された時点はP4、P11、P14でした。 糸球体(G)、近位尿細管(PCT)、遠位尿細管(DCT)での検査済みマーカーの発現は矢印でマークされ、アスタリスクは細胞外マトリックスでのリーリンの発現を示しています(a)。 挿入物は、画像で最も目立つ表現を示しています。 DAPI核染色は、主にDCT(矢じり)でDAB1とリーリンの不十分な共局在を明らかにしました。 スケールバーは20µmで、すべての画像を参照します。
P4では野生型動物の糸球体およびPCTでDAB1の免疫反応性はほとんどありませんでしたが、軽度の反応性を持つ陽性細胞の割合(表2)はP11およびP14で有意に増加しました(p <0。05、図3b)。 dctでは、dab1は主に細胞膜の頂端部と外側部で発現し(図4b)、強い反応性を示しました(表2)。="" 陽性細胞の割合は、以前の構造よりも有意に高く、特に緻密斑(図4b)では約60%(図3b)でした。="" p14での野生型動物のdctを除いて、dab1とリーリンの共局在はほとんどありませんでした(矢じり、図4b)。="" 14の生体分子2021、11、609="">腎臓リーリンマーカー(a)と出生後の野生型の二重免疫蛍光染色腎臓DAB1とリーリンマーカー付き(b)。 (a、b)核DNA DAPI染色はDAB1とマージされ、リーリン免疫蛍光が並行して表示されます(マージ)。 観測された時点はP4、P11、P14でした。 糸球体(G)、近位尿細管(PCT)、遠位尿細管(DCT)での検査済みマーカーの発現は矢印でマークされ、アスタリスクは細胞外マトリックスでのリーリンの発現を示しています(a)。 挿入物は、画像で最も目立つ表現を示しています。 DAPI核染色は、主にDCT(矢じり)でDAB1とリーリンの不十分な共局在を明らかにしました。 スケールバーは20µmで、すべての画像を参照します。 P4では野生型動物の糸球体およびPCTでDAB1の免疫反応性はほとんどありませんでしたが、軽度の反応性を持つ陽性細胞の割合(表2)はP11およびP14で有意に増加しました(p <0.05、図3b)。 dctでは、dab1は主に細胞膜の頂端部と外側部で発現し(図4b)、強い反応性を示しました(表2)。="" 陽性細胞の割合は、以前の構造よりも大幅に高く、特に緻密斑(図4b)では約60%(図3b)でした。="">
NOTCH2およびLC3Bの空間的および時間的発現パターンNOTCH {{0}}陽性細胞の割合は、観察されたすべての時点で、両方の動物遺伝子型の糸球体で20%未満でした。 陽性細胞のP14パーセントでのみ、野生型動物よりもヨタリ動物の糸球体で有意に高かった(p <0.05、図3c)。 染色強度は軽度から中程度であり(表2)、ほとんどが核周囲に位置していました(図5a–f)。="" 両方の動物遺伝子型のpctおよびdctでは、陽性細胞の割合が時間とともに増加しました。="" p14では、陽性細胞の割合は、野生型動物のpctおよびdctよりもヨタリ動物のpctおよびdctで有意に高かった(p=""><0.05、図3c)。 観察されたすべての時点でのシグナル強度は軽度から中程度であり(表2)、細胞質全体に散在していました(図5a–f)。="">腎臓NOTCH2およびLC3Bマーカーと、切断されたカスパーゼ3(CASP3)マーカーによる免疫ペルオキシダーゼ染色。 (a–f)核DNADAPI染色はNOTCH2およびLC3Bと統合されています。 観測された時点はP4、P11、P14でした。 糸球体(G)、近位尿細管(PCT)、遠位尿細管(DCT)でのNOTCH2およびLC3Bマーカーの発現は、矢印でマークされています。 特に強いLC3B反応性は、腐敗した糸球体のボーマン嚢で観察できます(アスタリスク、e)。 挿入物は、画像で最も目立つ表現を示しています。 CASP3は、観察されたすべての時点でほとんど発現していませんでした。 唯一の有意な発現は、P14のヨタリマウスの糸球体でした(矢印)。 スケールバーは20µmで、すべての画像を参照します。 14 3の生体分子2021、11、609 9。4。 NOTCH2およびLC3Bの空間的および時間的発現パターンNOTCH2-陽性細胞の割合は、観察されたすべての時点で、両方の動物遺伝子型の糸球体で20%未満でした。 陽性細胞のP14パーセントでのみ、野生型動物よりもヨタリ動物の糸球体で有意に高かった(p <0.05、図3c)。 染色強度は軽度から中程度であり(表2)、ほとんどが核周囲に位置していました(図5a–f)。="" 両方の動物遺伝子型のpctおよびdctでは、陽性細胞の割合が時間とともに増加しました。="" p14では、陽性細胞の割合は、野生型動物のpctおよびdctよりもヨタリ動物のpctおよびdctで有意に高かった(p=""><0.05、図3c)。>

図5.出生後の野生型とヨタリの免疫蛍光染色腎臓NOTCH2およびLC3Bマーカーと、切断されたカスパーゼ3(CASP3)マーカーによる免疫ペルオキシダーゼ染色。 (a–f)核DNADAPI染色はNOTCH2およびLC3Bと統合されています。 観測された時点はP4、P11、P14でした。 糸球体(G)、近位尿細管(PCT)、遠位尿細管(DCT)でのNOTCH2およびLC3Bマーカーの発現は、矢印でマークされています。 特に強いLC3B反応性は、腐敗した糸球体のボーマン嚢で観察できます(アスタリスク、e)。 挿入物は、画像で最も目立つ表現を示しています。 CASP3は、観察されたすべての時点でほとんど発現していませんでした。 唯一の有意な発現は、P14のヨタリマウスの糸球体でした(矢印)。 スケールバーは20µmで、すべての画像を参照します。
両方の動物遺伝子型の糸球体とDCTでは、LC3B陽性細胞の割合が時間の経過とともに増加しました(p<0。05、図3d)。 p11およびp14では、陽性細胞の割合は、野生型動物の糸球体よりもヨタリ動物の糸球体で有意に高かった(p=""><0。05、図3d)。 ヨタリ動物の糸球体では、観察されたすべての時点で、核周辺および核空間(図5a–f)にある染色強度はほとんど中程度から強い(表2)でしたが、野生型マウスの糸球体では、強度はほとんど中程度です(表2)。="" ヨタリおよび野生型動物のpctには、観察されたすべての時点で陽性細胞の約20%が含まれていました(p=""><>
切断されたCASP-3式活性化されたCASP-3の発現はほとんどありませんでした腎臓観察されたすべての時点での野生型動物の割合。 ヨタリマウスのPCTおよびDCTでは、いくつかの個々の細胞がCASP -3-陽性でした(図3e)。 P14のヨタリ腎臓の糸球体でのみ(図5e)、陽性細胞の割合は、腎臓野生型マウスの数(p <0 .05、図3e)。
討論
肝臓形態形成と発達は、多数の遺伝子の相互作用を通じて正確に調整された複雑なプロセスです。 の先天性異常肝臓尿路(CAKUT)は最も一般的な先天性欠損症であり、このようなすべての欠損症の23%を占め、末期の主な原因となります。腎疾患子供たち[28,29]。 単一遺伝子障害がCAKUTの主な原因である可能性があり、これまでに20を超える遺伝子の突然変異がCAKUTの原因として特定されてきました[30]。 私たちの前の仕事が正常な胎児の人間の間にDAB1の素晴らしい発現を示したように肝臓開発[9]、我々はDAB1が哺乳類の間に重要な役割を果たすかもしれないと仮定しました肝臓発達。 私たちの仮説を証明するために、私たちは調査しました肝臓Dab1ノックアウトマウスにおけるリーリン、NOTCH2、LC3B、および活性化CASP3タンパク質の形態と発現パターン。

CISTANCHEは腎臓/腎臓の痛みを改善します
ヨタリマウスのセクショニング腎臓より薄い皮質と有意に小さい平均を明らかにした肝臓野生型動物と比較したPCT、DCT、Gの直径。 の減少肝臓不十分なネフロンの寄付によって引き起こされるサイズは、腎臓成人発症の高血圧および慢性腎臓病の素因となる最も一般的なCAKUT障害の1つである形成不全[31]。 さらに、TEMで撮影された顕微鏡写真は、ヨタリマウスが足突起の消失と線維化スリットの欠如を伴う顕著な有足細胞の損傷を示したことを明らかにしました。 損傷後、有足細胞は消失の過程を経て構造を失い、線維化バリア機能が低下します[32]。 ネフローゼ症候群のすべての形態、および巣状分節性糸球体硬化症(FSGS)は、有足細胞の構造または機能の欠陥を特徴としています[33]。
私たちの現在の研究では、DCTの細胞膜の頂端部と外側部でDAB1の発現が最も高いことが示されましたが、REELINは主にPCTの細胞質全体に散在していました。 調査した時点では、ヨタリマウスの尿細管に形態学的変化は観察されなかったが、尿細管間質性コンパートメントにおけるDAB1の役割を解明するためにさらなる調査が必要である。 主にDCTで、DAB1タンパク質とREELINタンパク質が時折共局在していました。 これらの発見は、胎児のヒトにおけるこれら2つのタンパク質の発現に関する以前の研究に続くものです。肝臓開発[9]。 これは、DAB1とリーリンがヒトとマウスで同様の役割を果たしていることを示唆している可能性があります腎臓Crk、MAPK、PI3K / Akt / mTORシグナル伝達カスケードなどの下流経路のいくつかを活性化することによって[34–36]。 私たちのデータはまた、ヨタリマウスの糸球体におけるリーリン発現の増加を明らかにしました。 興味深いことに、以前の研究では、糸球体でのDAB1リン酸化とリーリン発現の増加は、Ang II注入ラットでの高血圧、タンパク尿、および有足細胞傷害を伴うことが示されています[10]。
さらに、免疫蛍光染色により、P14ヨタリマウスの糸球体におけるNOTCH2受容体の発現の増加が明らかになりました。 ネフロンの成熟が達成されると、NOTCH2の発現がダウンレギュレーションされることはよく知られています。腎臓の怪我、糖尿病性腎症やFSGSなど[15,37]。 アドリアマイシン誘発性ネフローゼ症候群のマウスも、線維症を改善する活性化NOTCH2の発現増加を示しました[38]。 調査した時点では、線維症の増加には気づかなかったが、出生後のヨタリにおける発現されたNOTCH2の正確な役割を解明することは残っている。腎臓。線維性変化が後の段階で起こるかどうかについてのさらなる観察が必要であろう。 しかし、NOTCH2活性化の増加による短期的な影響が、糖尿病性腎症などの長期的なモデルでは失われる、損傷した有足細胞の強力な生存利益と関連していることを示唆するいくつかの発見がすでにあります[39]。
P11およびP14ヨタリマウスの糸球体におけるより高いLC3B発現は、おそらく有足細胞におけるオートファゴソームの蓄積を反映していました。 オートファジーが加速されたことを明確に示すため。 LC3-IIとLC3-Iのタンパク質発現の比率を分析する必要があります。 通常の状態では、オートファジーは通常の状態に必要です腎臓機能[40]、特に有足細胞において。 細胞分裂と置換の能力が限られているため、それらは高い基礎レベルのオートファジーを示します[41]。 これらの発見にもかかわらず、LC3B発現の上昇は、プロレニン受容体条件付きノックアウトマウスで見られるように、主に足突起の消失とネフローゼ症候群の発症に関連して、いくつかの糸球体疾患で報告されています[45,46]。 これらすべての研究は、病的状態における強化されたオートファジーの保護的役割を示唆しており、オートファジーが活性化されて有足細胞損傷から保護するアドリアマイシン誘発腎症[43]や、それが遅延する年齢依存性糸球体疾患の発見によってさらに裏付けられています。の進行性の機能低下腎臓機能[40]。 人間の分析肝臓生検はまた、特発性ネフローゼ症候群の最も一般的な原因の1つである微小変化群ネフローゼ症候群(MCNS)を含む、いくつかの糸球体疾患における足突起の消失に関連するオートファジーの増加の証拠を示しました[19]。 糖尿病性腎症およびリポ多糖誘発性急性の状態で腎臓障害、PI3K / AKT / mTOR経路の阻害を介していくつかの治療法でオートファジーを強化すると、腎機能が改善されます[47,48]。 これらすべての発見は、オートファジーがストレス適応に不可欠な細胞保護の役割を持っていることを示唆しています腎臓障害、およびその変調は有望な治療戦略である可能性がありますが、状況によっては、オートファジーも有害であり、細胞死に進行する可能性があります。

CISTANCHEは腎臓/腎不全を改善します
オートファジーの上昇を除いて、アポトーシスのレベルの増加は、P14ヨタリマウスの糸球体でも観察できました。 オートファジーは通常アポトーシスを防ぎますが、特定の病理学的状況下では、アポトーシスを増強および促進することにより、細胞の生存に逆の影響を与える可能性もあります[42]。 出生後、アポトーシス腎臓の条件を除いて、大幅に減少します腎臓障害、特発性ネフローゼ症候群など、疾患の発症に寄与する[23]。 常染色体劣性先天性異常の潜在的な新規原因肝臓と尿路。 ただし、DAB1の主な役割は肝臓開発は不明なままです。 さらに、これらのマウスは、足突起の異常と、糸球体のリーリン、NOTCH2、LC3B、および切断されたCASP3タンパク質のレベルの上昇を示しました。これは、形成不全と相関して、潜在的な死因となる可能性があるネフローゼ症候群などの糸球体損傷につながる可能性があります。離乳期のこれらの動物の。 この仮説を確認するには、血圧およびその他の臨床検査パラメーター(血清クレアチニン、アルブミン、タンパク質のレベルなど)に関する追加情報を提供する必要があります。


