

カンカ・ツブロサⅡ由来カルコン合成酵素のクローニング、機能同定および発現解析
Mar 25, 2024
3 結果と分析
3.1 CtCHS遺伝子のクローニング
「カルコンシンターゼ」と注釈が付けられた 4 つの配列が、Cistances tubulosa の花のトランスクリプトーム データを使用してスクリーニングされました。 NCBI の Blast 比較により、CHS 遺伝子の全長を持ち、FPKM が 10 を超える配列が 1 つだけあることがわかりました。この配列に基づいて特定のプライマーが設計され、PCR 増幅によって約 1200 bp の断片が得られました。カンサス チューブロサの花の cDNA を鋳型として使用します (図 1)。 PCR産物をゲルから回収し、pCE2TA/Blunt-Zeroベクターに接続した。 配列決定の結果はトランスクリプトーム分析と一致しました。 この遺伝子はCtCHSと名付けられた。 配列の長さは 1173 bp で、390 個のアミノ酸をコードします。

Wecistanche のサポートサービス - 中国最大の Cistanche 輸出業者:
メールアドレス:wallence.suen@wecistanche.com
WhatsApp/電話番号:+86 15292862950
仕様の詳細についてはこちらをご覧ください:
https://www.xjcistanche.com/cistanche-shop
3.2 CtCHS のバイオインフォマティクス解析
3.2.1 CtCHS の物理的および化学的性質と膜貫通ドメインの解析
オンライン ソフトウェア ProtParam を使用して、CtCHS 遺伝子によってコードされるタンパク質の物理的および化学的特性を分析しました。 CtCHSは39個の0アミノ酸をコードし、分子式はC1908H3041N511O562S22、相対分子量は42 836.54、理論上の等電点は5.85であり、不安定です。 係数IIは43.24で不安定なタンパク質であり、全体の平均親水性(GRAVY)は-0.052で親水性タンパク質である。 さらに、Prot Scale オンライン ツールを使用して、タンパク質の親水性/疎水性を分析しました。 分析の結果、CtCHSタンパク質の親水性/疎水性の最大値は2.422(342)、最小値は-2.489(119)であった。 CtCHS遺伝子がコードするアミノ酸ペプチド鎖は、疎水性アミノ酸残基よりも親水性アミノ酸残基の方が多く、親水性タンパク質である。 オンライン ソフトウェア TMHMM を使用して、タンパク質の膜貫通構造を予測しました。 CtCHS タンパク質には膜貫通ドメインがありません。
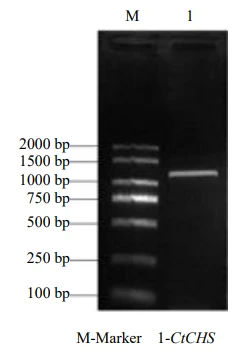
図1 CtCHS遺伝子のPCR増幅
3.2.2 CtCHSタンパク質の二次構造と三次構造の予測
オンライン ツール SOPMA を使用してタンパク質の二次構造を予測しました。 結果を図2-Aに示します。 CtCHS タンパク質の二次構造は、44.87% のヘリックス、31.03% のランダム コイル、15.64% の伸長鎖、および 8.46% のシートで構成されています。 レベル構造。 オンライン解析ソフトウェアSWISS-MODELを用いてタンパク質の立体構造を予測し、イネCHS1の結晶構造を鋳型としてCtCHSタンパク質の立体構造を予測した。 結果を図2-Bに示します。 カンカ CtCHS と米 CHS1 の濃度は 83.55% です。
3.2.3 配列比較と系統樹解析と応用
DNAMAN ソフトウェアは、CtCHS と他の種の CHS アミノ酸配列の間の相同性比較を実行します。 結果を図3-Cに示します。 CtCHS アミノ酸配列は、Sesamum indicum L. (XP_011091402.1) および Antirrhinum majus L. (P06515.1)、Mazus pumilus (NL Burman)Steenis (AAN05791.1)、Erythranthe lewisiiG と一致します。 L. Nesom & NS Fraga (AHJ80976.1)、Perilla frutescens (L.) Britton (O04111.1 )、およびArabidopsis thaliana (L.) Heynh。 (NP_196897.1)。 CHS のアミノ酸配列は非常に類似しており、その類似度は 90.93%、90.68%、90.18%、89.42%、89.42%、81.61% です。

30% エキナコシドおよび 12% アクテオシドを含む天然有機シスタンケ抽出物

さらに、多重配列アラインメントにより、CtCHS が触媒残基 Cys164、His303、および Asn336 を保存していることも示されました。 植物CHSファミリーにおけるCistanche tubulosa CtCHSの進化的位置をさらに理解するために、MEGA-Xソフトウェアを使用して、CtCHSと他の植物のCHSタンパク質との間の系統樹を構築した。 結果を図 3-DE lewisii AHJ80976 に示します。1) ElCHS は密接に関連しています。
3.3 CtCHS 原核生物の発現と精製
pET-28a-CtCHS プラスミドを大腸菌発現株 BL21 (DE3) に形質転換し、低温で IPTG によってタンパク質発現を誘導しました。 ニッケルイオンアフィニティークロマトグラフィーカラムを用いてタンパク質を精製し、10% SDSPAGEで検出した。 結果を図 3 に示します。CtCHS タンパク質のバンドは 40000 付近に現れ、これは CtCHS タンパク質の相対分子量 42,800 と一致しています。
3.4 CtCHS酵素活性分析
CtCHS の機能を確認するために、精製した CtCHS タンパク質をマロニル CoA、4-クマロイル CoA とインキュベートし、生成物を HPLC および MS を使用して検出しました。 自然条件下では、ナリンゲニン-カルコンは溶液中で不安定であり、容易に環化してナリンゲニンになります。 したがって、ナリンゲニン-カルコンおよびナリンゲニンを標準対照として選択しました。
HPLC テストの結果を図 4-A および B に示します。酵素反応生成物の保持時間はナリンゲニン標準の保持時間と同様です。 どちらも UV 吸収スペクトルの 289 nm に最大吸収を持ち、これはナリンゲニン - カルコンの保持時間とは異なります。 時間と UV 吸収スペクトルは異なりますが、ネガティブコントロールとして、高温不活化 CtCHS タンパク質を基質とインキュベートした後の生成物には、ナリンゲニン、カルコン、およびナリンゲニンが含まれていませんでした。 質量分析によるさらなる検出では、第 1 レベルの質量スペクトル (図 4-C、D) により、酵素反応生成物には [MH] ピーク m/z271.060 97 があり、ナリンゲニンには [MH] があることが示されました。 ]-ピークm/z 271.060 91。
MS2 スペクトル (図 5-E、F) を比較すると、CtCHS 酵素反応生成物とナリンゲニンは両方とも m/z 107、151、および 177 に特徴的なフラグメント ピークを持ち、これは文献報告 [19] と一致しています。 CtCHS がカルコン錯体を持っていることを示しています。 酵素活性により、マロニル-CoAと4-クマロイル-CoAからナリンゲニン-カルコンへの反応を触媒できます。
3.5 細胞内局在解析
細胞における CtCHS タンパク質の役割を研究するために、pCAMBIA1300-35S-GFP-CtCHS プラスミドを構築し、シロイヌナズナ プロトプラストに形質転換してその細胞内局在を観察しました。 結果を図5に示します。対照として、pCAMBIA1300-35S-GFPタンパク質は核および細胞質に分布していましたが、pCAMBIA1300-35S-GFP-CtCHS融合タンパク質は主に細胞質に分布していました。これは、CtCHS タンパク質が植物細胞の細胞質内で機能する可能性があることを示しています。 関数。

3.6 CtCHS発現パターン解析
qRT-PCR を使用して、白、紫、赤の 3 つの色のカンクサ花における CtCHS の相対発現を検出しました。 結果を図6に示す。紫色および赤色の花におけるCtCHSの発現は、白色の花よりも有意に高かった。 量。 白い花と比較して、紫色の花の CtCHS 発現レベルは 8.44 倍、赤い花の CtCHS 発現レベルは 3.21 倍高くなります。 これらの結果は、CtCHS 発現レベルの変化がカンクサの花色の違いに関連している可能性があることを示しています。 発現レベルが高いほど花の色が濃くなります。 、表現レベルが低いほど、花の色は明るくなります。
****P<0。000 1図。 6 異なる色の花における CtCHS の相対的発現レベル
4。討議
CHSは、フラボノイド生合成経路における重要な酵素そしてそれに関連しています花色の規制多くの植物で。 たとえば、この花の色は、ナデシコL.[20] そしてペチュニア×ハイブリダ・ホート。 exVilm.[22] すべてCHSの影響を受けます。 コントロール。カンクイ花色は主に白、赤、紫の3色ですが、その花色の制御機構はまだ報告されていません。 この研究では、RT-PCR を使用して CtCHS 遺伝子をクローニングしました。カンクイの花のトランスクリプトームデータ解析、そしてその
バイオインフォマティクス解析その結果、CtCHSはホオズキのElCHS(AHJ80976.1)のアミノ酸配列と高い類似性があり、遺伝的に密接な関係があることが判明した。 CHS は III 型ポリケチド シンターゼ (PKSIII) であり、研究により CHS には保存された Cys-His-Asn 触媒三連構造があることが判明しました [23]。 この研究では、アミノ酸配列アラインメント分析により、CtCHS が触媒残基 Cys164、His303、および Asn336 を保存していることが示され、CtCHS が典型的なカルコンシンターゼ機能を持っている可能性があることが示されました。
できる。 酵素活性分析は、大腸菌における CtCHS タンパク質の原核生物発現を使用して実行され、HPLC および MS によって検出されました。 CtCHS タンパク質は、4-クマロイル CoA およびマロニル CoA を触媒してナリンゲニン カルコンを生成できることが判明しました。
CHS は多くの植物のフラボノイドの合成に関与していますが、その細胞内の位置は種によって異なります。 例えば、Carthamus tinctorius L. CtCHS1[24]、Morus atropurpurea Roxb。 MaCHS[25]、Eupatorium adenophorum Spreng。 EaCHS[26]はすべて細胞質に存在しますが、Paeonia delavayi var. ルテア (フランスのデラヴェ) フィネとガニップ。 PdCHS
[27]、ナス Solanum melongena L. SmCHS [28] は細胞質および核に存在し、ブドウ Vitis vinifera L. VvCHS は細胞質、核および細胞壁に存在します [29]。 この研究では、pCAMBIA1300-35S-GFP-CtCHS プラスミドを使用してシロイヌナズナのプロトプラストを形質転換し、CtCHS タンパク質が主に細胞質に局在し、細胞質内でのナリンゲニン - カルコンの生成を触媒する可能性があることが観察されました。フラボノイドの蓄積を促進します。
フェニルプロパノイド経路は、4-クマロイル CoA からフラボノイド合成経路とリグナン生合成経路に分岐します。 CHSは4-クマロイルCoAとマロニルCoAを触媒してナリンゲニンとカルコンを生成し、フラボノイドの生成を開始します。 化合物様化合物の生合成経路は、この経路の最初の重要な酵素です [30]。 したがって、高度に発現された CHS は、植物がより高いレベルのフラボノイドを蓄積し、より濃い色の花を咲かせるのに有益です。 例えば、ギボウシ(Hosta plantaginea) (Lam.) Aschersの紫色の花を咲かせる品種におけるCHSの発現レベルは、白い花を咲かせる品種よりも高い。 ギボウシ HpCHS をタバコに形質転換すると、野生型タバコと比較して、過剰発現植物は花弁が暗くなり、総アントシアニン含有量が高くなります [31]。
この研究では、CtCHS 遺伝子の発現レベルがカンカンの花の色に関係していることを明らかにしました。 濃い紫色の花や赤い花では発現率が高く、淡い色の白い花では発現率が低くなります。 CtCHS の発現の違いは、Cistanches tubulosa の花の違いによるものと考えられます。 スーツの色や色が違うのも理由の一つです。 要約すると、この研究はカンクイの花から CtCHS 遺伝子をクローニングし、それに対してバイオインフォマティクス分析を実施しました。 CtCHS 組換えタンパク質は、大腸菌での外因性発現によって得られました。 酵素活性分析により、CtCHS タンパク質が4-クマロイル補酵素を触媒できることが証明されました。 Aとマロニル補酵素Aはナリンゲニンカルコンを生成します。 CtCHS 遺伝子は、紫と赤の花で高度に発現され、白い花では発現が低いことが判明しました。 これらの結果は、CtCHS 遺伝子がカンクサにおけるさまざまな花色の生成を制御している可能性があることを示しており、このことはカンクサの花色の制御機構をさらに研究するのに有益であり、カンクサの花色の制御における CtCHS の役割に関するその後の研究の参考となる。カンクサの花の色。


