

腫瘍生物学におけるディフェンシンの役割パート 1
May 25, 2023
概要:
ディフェンシンは長い間、単なる抗菌ペプチドであると考えられてきました。 長年にわたり、-ディフェンシンと-ディフェンシンの両方のサブファミリーについて、より多くの免疫関連機能が発見されてきました。 このレビューは、腫瘍免疫におけるディフェンシンの役割についての洞察を提供します。 ディフェンシンは特定の種類のがんに存在し、発現の仕方が異なるため、研究者は腫瘍微小環境におけるディフェンシンの役割を解明し始めました。 ヒト好中球ペプチドは、細胞膜を透過させることによって直接腫瘍溶解性を示すことが実証されています。 さらに、ディフェンシンは DNA 損傷を与え、腫瘍細胞のアポトーシスを誘導する可能性があります。 腫瘍微小環境では、ディフェンシンは、T 細胞、未熟樹状細胞、単球、マスト細胞などの免疫細胞のサブセットに対する化学誘引物質として機能します。
さらに、標的の白血球を活性化することにより、ディフェンシンは炎症誘発性シグナルを生成します。 さらに、免疫アジュバント効果がさまざまなモデルで報告されています。 したがって、ディフェンシンの作用は、その直接的な抗菌作用、すなわち粘膜表面に侵入した微生物の溶解を超えて及んでいます。 ディフェンシンは、炎症促進性シグナル伝達イベントの増加、細胞溶解(抗原生成)、抗原提示細胞の誘引と活性化を引き起こすことで、獲得免疫系の活性化と抗腫瘍免疫の生成に関連した役割を果たす可能性があり、そのため、免疫療法の成功に貢献します。
白血球を標的とすることは、がんや免疫疾患の治療における新しいアプローチであり、免疫系を活性化して免疫力を高めることができます。 白血球標的療法とは、T細胞、B細胞、ナチュラルキラー細胞などの免疫細胞を選択的に活性化し、体内のがん細胞や異物を攻撃するように誘導し、治療目的を達成することです。
白血球療法をターゲットにする鍵は、免疫系の反応を刺激し、攻撃される細胞への影響を最小限に抑えるための適切な措置を講じることです。 このプロセス中に、免疫細胞が活性化され、他の免疫細胞の反応を活性化する化学物質であるサイトカインと触媒が放出され、体内の炎症が増加し、免疫力が高まります。
したがって、標的白血球療法は体の免疫系を活性化し、免疫力を強化し、体の免疫系と協力してより良い治療効果を生み出すことができます。 免疫力の向上には特に注意が必要であることがわかります。 シスタンシュは免疫力を大幅に向上させることができます。 肉灰には、多糖類、キノコ、黄李などのさまざまな生物学的活性成分が含まれています。これらの成分は、さまざまな種類の細胞の免疫系を刺激し、免疫活性を高めることができます。
キーワード:
ディフェンシン; 腫瘍生物学; 免疫細胞。
1. はじめに
ディフェンシンは、3 つの分子内ジスルフィド結合を介して接続された 6 つのシステイン残基を含む小さなカチオン性ペプチドのファミリーであり、中央のシートがその構造を支配しています [1、2]。 3 つのサブファミリーが発見されています。 Lehrerらは1984年にウサギ顆粒球から最初の哺乳類ディフェンシンを同定した。その後、1985年に彼らは最初のヒトディフェンシン配列を報告し、当初は好中球またはヒト好中球ペプチド(HNP)由来の抗生物質ペプチドと呼んでいた[3,4]。 ]。 彼らはまた、宿主防御を強化する抗菌、抗ウイルス、抗真菌特性に基づいて、HNP-1 から 3 までの関連性の高いペプチドを表す「ディフェンシン」という用語を導入しました [4]。
その後、HNP-4 が発見されました。HNP-4 は、他の骨髄性 HNP と同じシステイン骨格を持ちますが、配列がわずかに異なり、アミノ酸の疎水性が大幅に高くなっています [5]。 HNP-4 は、好中球ディフェンシンの総含有量のわずか約 2% にすぎません。これが、おそらく最初の 3 つの HNP の発見中に見落とされた理由です [6]。 白血球ディフェンシンは霊長類、ウサギ、およびその他の齧歯動物種でのみ報告されているため、すべての哺乳類が白血球ディフェンシンを持っているわけではありません[2]。
この点に関して、マウスには好中球ディフェンシンが欠如していることに注意することが重要です[7]。 したがって、マウスモデルにおける好中球ディフェンシンの役割の研究は、トランスジェニックマウスでのみ可能です。 しかし、マウスの腸のパネート細胞は、陰窩とも呼ばれるディフェンシンを産生します [8]。 好中球ディフェンシンと同様に、腸陰窩は抗菌特性を持っていますが、マウス陰窩の数は 4 つのヒト骨髄ディフェンシンのグループよりもはるかに多くなっています [9,10]。 マウス陰窩の発見と同時期に、ヒト・パネート細胞によって2つのディフェンシンが分泌されることも判明した:ヒト・ディフェンシン5とヒト・ディフェンシン6(HD-5とHD-6)は、共通の特性を持っている骨髄性ディフェンシンを伴う[11,12]。 HD-5 と HD-6 は、既知の 6 つのヒトディフェンシンのグループを締めくくります。

次に同定されたサブファミリーは、ディフェンシンでした。 その名前は、それらが -ディフェンシン の後に生じたことを示唆していますが、 -ディフェンシン 遺伝子 (DEFA) は -ディフェンシン 遺伝子 (DEFB) の子孫であり、両方のファミリーは共通のプレ哺乳類のディフェンシン遺伝子[13、14]。 ヒト ディフェンシンもさらに多く、約 40 個のヒト ディフェンシン遺伝子が同定されています [15,16]。 興味深いことに、α-ディフェンシンはウシの気管粘膜で最初に検出され[17]、さらなるα-ディフェンシンがウシ好中球から精製された[18]。 最初のヒト -ディフェンシン、すなわちヒト -ディフェンシン-1またはhBD-1が単離されたのは、ヒトにおけるディフェンシンの最初の記載から10年後の1995年でした[19]。 それ以来、さらに多くのαディフェンシンが発見されており、これらはすべて上皮および/または粘膜組織で発現され、微生物とほぼ継続的に接触している部位で抗菌保護を提供しています[16]。
次に同定されたサブファミリーは、ディフェンシンでした。 その名前は、それらが -ディフェンシン の後に生じたことを示唆していますが、 -ディフェンシン 遺伝子 (DEFA) は -ディフェンシン 遺伝子 (DEFB) の子孫であり、両方のファミリーは共通のプレ哺乳類のディフェンシン遺伝子[13、14]。 ヒト ディフェンシンもさらに多く、約 40 個のヒト ディフェンシン遺伝子が同定されています [15,16]。 興味深いことに、α-ディフェンシンはウシの気管粘膜で最初に検出され[17]、さらなるα-ディフェンシンがウシ好中球から精製された[18]。 最初のヒト -ディフェンシン、すなわちヒト -ディフェンシン-1またはhBD-1が単離されたのは、ヒトにおけるディフェンシンの最初の記載から10年後の1995年でした[19]。 それ以来、さらに多くのαディフェンシンが発見されており、これらはすべて上皮および/または粘膜組織で発現され、微生物とほぼ継続的に接触している部位で抗菌保護を提供しています[16]。
一般に、ヒト ディフェンシンの構造は、3 つのジスルフィド結合によって所定の位置に保持された三本鎖逆平行シートによって特徴付けられます [1、21、22] (図 1)。 ディフェンシンでは、これらのジスルフィド結合はシステイン残基 1 ~ 6、2 ~ 4、および 3 ~ 5 の間で形成されますが、ディフェンシンではこれはシステイン残基 1 ~ 5、2 ~ 4 および 3 ~ 6 の間で形成され、その結果、構造がわずかに異なります。 [2]。

発見後すぐに、ディフェンシンは主に抗菌剤として作用すると結論づけられましたが、当時でさえ、ディフェンシンが炎症、組織損傷、その他のプロセスにも役割を果たしている可能性があることが示唆されていました[26]。
現在、ディフェンシンはアラーミンファミリーに含まれています。 アラミンは、ホストを保護する最前線の防御者としての役割の観点から徹底的に研究されています。 これらは、さまざまな免疫関連プロセスのイニシエーターとして機能するタンパク質またはペプチドです [27]。 それらは、より広範な DAMP (損傷関連分子パターン) ファミリーに属し、その起源に基づいて細分化できます。ディフェンシン、カテリシジン、好酸球由来の神経毒など、顆粒由来のものもあります。 高移動度グループボックス 1 など、核起源のものもあります。 また、熱ショックタンパク質など、細胞質に由来するものもあります[27]。 ほとんどの顆粒由来のアラーミンは抗菌ペプチドまたは AMP としても知られており、このサブグループにはディフェンシンが含まれます。
通常の状況では、自然免疫システムと適応免疫システムが連携して、細菌やウイルスなどの非自己の脅威から私たちを守ります。 しかし、がんは「自己」細胞から発生しますが、私たちの免疫システムは、抗原組成と生物学的挙動の変化により、悪性細胞を認識して殺すことができます[28、29]。 癌細胞の遺伝的不安定性は、腫瘍特異的抗原の主な供給源である[29]。 さらに、遺伝子発現の変化であるエピジェネティックな異常もがんにおいて重要な役割を果たしており、成人期には通常胎児の発育に限定される遺伝子の転写を引き起こす可能性がある[29、30]。 多くの腫瘍は抗原性があることに加えて、免疫抑制環境を作り出すことで免疫系から逃れようとします。
したがって、免疫系と腫瘍細胞の間の相互作用が複雑であることは明らかであり、免疫療法の台頭により、抗腫瘍免疫の重要性と免疫回避の可能性を見逃してはなりません。 単純な抗菌活性を超えた免疫関連機能を示す証拠が増えているため、ここでは腫瘍微小環境(TME)におけるディフェンシンの潜在的な役割を要約します。

2. 腫瘍細胞に対する直接的な影響
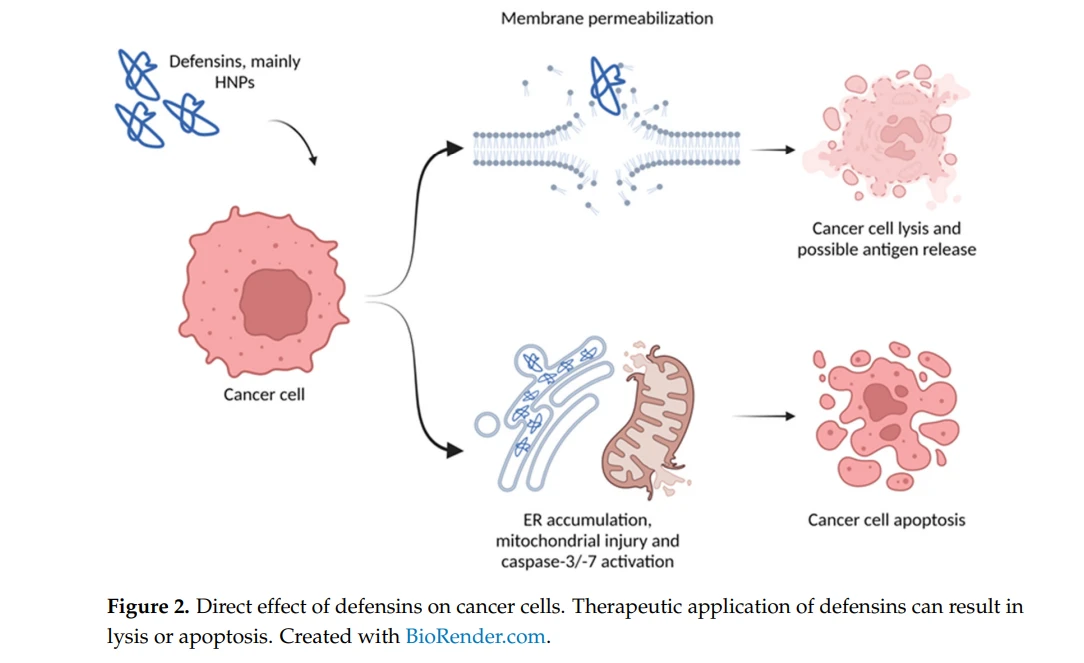
まず、抗菌効果と同様に、βディフェンシンは腫瘍細胞に対して直接的な細胞毒性効果を有する可能性があります。 考えられる作用機序は、膜との直接的な物理的相互作用から細胞死経路の活性化まで多岐にわたります (図 2)。 HNP-1〜3は、カスパーゼ-3/-7活性化の兆候を伴う、ミトコンドリア損傷およびその他の不特定の経路に関連するA549細胞およびジャーカットT細胞の細胞死を誘導した[31,32]。 さらに、A549 細胞では、カスパーゼ -3 の活性化の前に、HNP-1 が小胞体に蓄積しました [33]。 組換え HNP-1 が A549 細胞で発現されると、細胞内 HNP-1 によって引き起こされる (おそらく同様の) アポトーシス機構により、重大な増殖阻害が引き起こされました。 この抗腫瘍活性は、HNP-1をコードする真核生物発現プラスミドで処理したマウスで腫瘍細胞のアポトーシス、微小血管密度の減少、リンパ球浸潤の増加が見られたことから、生体内でも証明されました[34]。
PC-3 細胞を用いた生体力学的研究で、Gaspar らは、膜透過性に関連する形態学的変化を引き起こす HNP-1 の細胞毒性を実証しました [35]。 彼らは、2段階の細胞傷害プロセスを示唆しました。まず、膜が透過化されてHNPが細胞に侵入できるようになり、HNPが一本鎖DNA切断を誘導できるため、次にDNA損傷が発生します[35,36]。 ディフェンシン濃度に応じて、膜破壊は HNP-1 の二量体化によって引き起こされる可能性があり、二量体の疎水性側は膜の脂質鎖に面し、極性側は水性細孔を形成し、細胞漏出を引き起こします [37] ]。 がん細胞膜に対する HNP の相対的な「選択性」は、がん細胞膜中のホスファチジルセリンが豊富になり、がん細胞膜のアニオン性が高まり、カチオン性 HNP との相互作用の機会が増加することで説明できます [35,38]。 高い局所濃度の HNP-1 (10 μg/mL 以上) も、ケラチノサイト、初代上皮細胞、線維芽細胞に対して細胞毒性効果を及ぼしました [39,40]。
同様に、口腔扁平上皮癌細胞を高濃度の HNP-1 に曝露すると、腫瘍溶解効果が生じました [41]。 好中球から精製されたディフェンシンも、抗生物質ナイシンと併用投与すると、前立腺 (PC-3) および結腸直腸癌 (HCT-116) 細胞株にアポトーシスを誘導することにより、相乗的な抗腫瘍効果を示した [42] 。 好中球由来のディフェンシンは細胞傷害性であるだけでなく、主にパネート細胞で発現するディフェンシン 5 も腫瘍細胞の生存率に影響を与えます。 結腸癌細胞の増殖およびコロニー形成能力は、DEFA5 の過剰発現によって大幅に減少しました。 ヌードマウスでは、この遺伝子の過剰発現により腫瘍の増殖が抑制されました。 DEFA5 はそのシグナル伝達複合体に直接結合し、細胞増殖と転移の遅延を引き起こすため、その腫瘍抑制効果の背後にあるメカニズムにはホスホイノシチド 3- キナーゼが関与しています [43]。 興味深いことに、hBD-1 はヒト上皮成長因子受容体 2 (HER2) シグナル伝達を変化させることができ、尿由来 hBD-1 は膀胱癌の増殖を抑制することができました [44]。
ヒト肝細胞癌 (HCC) 細胞株では、hBD-1 の発現が劇的に下方制御されており、その発現を回復させると細胞増殖とコロニー形成能力が効果的に抑制されます。 ヌードマウス肝細胞癌モデルで試験したところ、hBD-1 の発現はタンパク質分解と小胞体 (ER) ストレスを誘導することにより腫瘍の増殖を阻害し、これにより続いて c-Jun N 末端キナーゼ (JNK) 経路が活性化されました。 hBD-1の阻害効果を媒介した[45]。 さらに、hBD-2 と -3 には、ホスファチジルイノシトール 4、5- 二リン酸に結合する腫瘍溶解性モチーフが含まれていることが報告されています。 この相互作用は腫瘍細胞の細胞溶解を媒介するために重要であり、hBD-2を用いた実験では、ディフェンシンがアポトーシスではなく急性溶解性細胞死を介して腫瘍細胞を死滅させることが示されました[46,47]。 hBD-3で処理されたA549腺癌細胞は即時細胞膜損傷を示したため、他の研究でもこれが確認されました。
さらに、hBD-3のマウスホモログであるDefb14は、継続的に注入すると、マウスのルイス肺癌の腫瘍増殖を有意に減少させることができた[48]。 hBD-5 は、1,2- ジメチルヒドラジン誘発結腸癌モデルにおいても、有望な in vivo 抗癌効果を示しました。 好中球性顆粒球による腫瘍浸潤と同時に、腫瘍パラメーターの減少、異常な陰窩病巣、およびアポトーシス率の増加が観察されました。 hBD-5-処理マウスの結腸では、正常な構造が回復していることさえ明らかになりました。 hBD-5 は、細胞膜の流動性が変化しているため、癌細胞により多く結合し、最終的には健康な宿主細胞には影響を与えません [49]。 θ-ディフェンシンは特定の旧世界ザル種にのみ存在しますが、その腫瘍細胞を殺す能力は無視できません。 セリンに富んだθ-ディフェンシン類似体は、正常な乳房上皮細胞よりも乳がん細胞株に対してより多くの細胞毒性を示しました。

さらに重要なことは、類似体がトリプルネガティブ乳がん細胞株のシスプラチンおよび塩酸ドキソルビシン治療に相乗効果をもたらしたことである[50]。 抗菌ペプチドを持っているのは動物だけではありません。 PvD1 は、インゲン植物 (Phaseolus vulgaris) に含まれるディフェンシン様抗菌ペプチドの一例であり、直接的な抗がん活性も持つようです [51,52]。 このペプチドは乳房腫瘍細胞の内部に到達してアポトーシス現象を誘導することができたので、腫瘍細胞と比較して正常細胞に対して異なる効果をもたらしました。 他のディフェンシンと同様に、PvD1 は膜と相互作用し、場合によっては破壊を引き起こします。 さらに、PvD1 は細胞間の接着を調節しました。 これは、がん細胞の健康な組織への接着を防ぎ、転移の広がりを抑制する興味深い方法となる可能性があります [52]。
For more information:1950477648nn@gmail.com


