クワから分離されたクワノンTとサンゲノンAは、BV2およびRAW264.7細胞のNF-κBおよびHO -1/Nrf2シグナル伝達経路を調節することにより抗炎症効果を発揮します
Mar 30, 2022
詳細については。 コンタクトtina.xiang@wecistanche.com
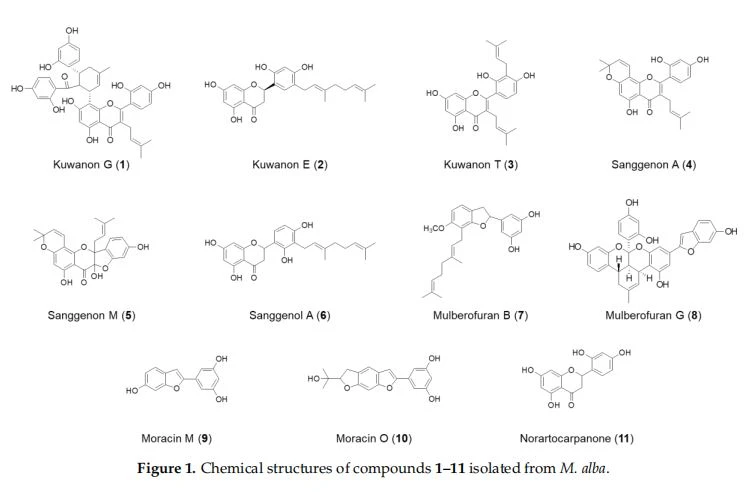
概要:以前にMorus alba樹皮のメタノール抽出物を調査し、抽出物から11の化合物を特性評価しました:クワノンG(1)、クワナE(2)、クワナT(3)、サンゲノンA(4)、サンゲノンM(5)、サンゲノールA(6)、mulberofuran B(7)、mulberofuran G(8)、moracin M(9)、moracin O(10)、およびnorartocarpanone(11)。 ここでは、抗炎症薬ミクログリア細胞(BV2)およびマクロファージ(RAW264.7)に対するこれらの化合物の効果。 それらの中で、3と4は、これらの細胞におけるリポ多糖(LPS)による一酸化窒素の生成を著しく阻害し、これら2つの化合物の抗炎症特性を示唆しています。 これらの化合物は、プロスタグランジンE2、インターロイキン-6、腫瘍壊死因子-cの産生、およびLPS刺激後の誘導型一酸化窒素シンターゼとシクロオキシゲナーゼ-2の発現を阻害しました。 3および4による前処理は、両方の細胞型で核因子カッパBシグナル伝達経路の活性化を阻害しました。 化合物はまた、核因子赤血球2-関連因子2の活性化を介してヘムオキシゲナーゼ(HO)-1の発現を誘導しました。HO-1の活性を抑制すると、引き起こされた抗炎症効果が逆転しました。 3と4で前処理することにより、抗炎症効果がHO-1によって調節されたことを示唆しています。 まとめると、3と4は、炎症性疾患.
キーワード:クワ; クワノンT; サンゲノンA; BV2; RAW264.7セル; 抗炎症効果

1.はじめに
クワ科に属する薬用植物であるクワは、伝統医学における肺の炎症状態の治療に使用されてきました[1]。 その根皮には、ウンベリフェロン、スコポレチン、ムチン、タンニンなどのさまざまな有効成分が含まれています。フラボノイド(モルシン、マルベリン、マルベリクロメン、シクロマルベリン、モラシンP、モラシンO、マルベロフランQ、クワナE、およびクワノンH)[2]、2-アリールベンゾフラン(モラシンD、モラシンP、モラシンO、およびマルベロフランO)、プレニル化フラボノイド(リコフラボンC、シクロムルベリン、ネオシクロモルシン、サンゲノンI、モラシン、およびクワナU)[3,4]。 最近の研究[5-7]で明らかにされているように、M。アルバ抽出物と活性化合物は肺疾患を軽減することができます。 肺に対するM.albaの薬理学的効果に加えて、イソプレニル化フラボノイド(サンゲノールQ、クワナT、サンゲノンN、ムルベロフランG、およびムルベロフランC)は、t-BHP誘導HepG2細胞で肝保護効果を発揮します[8]。 プレニルフラボノイド(クワノンA、クワナC、クワナT、およびモルシン)およびトリテルペノイド(ベツリン酸、アベイルズ、およびβ-シトステロール)は、3T3-L1脂肪細胞の分化を実質的に阻害します[9]。 M. albaの主要なフラボノイド成分であるモリン水和物は、慢性的な予測不可能なストレス誘発性の記憶障害を軽減し、この化合物が抗酸化防御システムを強化し、神経炎症経路を阻害する可能性があることを示しています[10]。 これらの研究は、M.albaに含まれる成分がさまざまな病気を治療するための潜在的な候補であることを示唆しています。
炎症、有害な刺激に対する複雑な自己防御反応は、マクロファージ、単球、白血球、肥満細胞、および他の細胞型を含むいくつかの免疫細胞の活性化を通じて免疫防御において重要な役割を果たします[11]。 マクロファージは体内で最も豊富で広く分布している免疫細胞であり、ミクログリアは中枢神経系(CNS)に存在するマクロファージです[12]。 マクロファージとミクログリア細胞は、炎症反応の主要なプレーヤーです。 それらは、リポ多糖(LPS)、サイトカイン、ケモカインなどの刺激に反応して活性化され、炎症状態を誘発する可能性があります[13]。 炎症性条件下では、過度に活性化されたマクロファージとミクログリア細胞は、炎症誘発性メディエーター(一酸化窒素(NO)、プロスタグランジンE2(PGE)、誘導性一酸化窒素シンターゼ(iNOS)、およびシクロオキシゲナーゼ(COX))の異常な調節を引き起こします-2 )および炎症誘発性サイトカイン(インターロイキン(IL)-6および腫瘍壊死因子(TNF)-a)、核因子カッパB(NF-B)シグナル伝達経路の活性化を介して[14,15]。 炎症誘発性メディエーターのレベルが上昇すると、炎症性疾患の進行がさらに悪化し、炎症性因子の活性化がさらに高まり、それによって悪循環が引き起こされます[16]。 したがって、炎症性メディエーターの調節は、炎症性疾患の治療と予防に不可欠です。
ヘムオキシゲナーゼ(HO)-1は、ヘムのビリベルジン、第一鉄イオン(Fe2 plus)、および一酸化炭素(CO)への分解を触媒する律速酵素です[17]。 HO -1の誘導は、核因子赤血球2-関連因子2(Nrf2)の活性化によって調節されます。 HO -1は、酸化ストレスと炎症に反応して誘発され、組織を保護し、体内の恒常性を維持します[18]。 したがって、HO -1誘導を標的とすることは、炎症性疾患を治療するための潜在的な戦略の1つです。
炎症性疾患を治療するために天然物から候補者を探索するための継続的な取り組みにおいて、ここでは抗炎症効果LPS誘導BV2およびRAW264.7細胞におけるM.albaから単離された11l化合物の分析。
2.結果
2.1.M.albaから単離された11の化合物がBV2およびRAW264.7細胞の生存率に及ぼす影響
以前の研究では、M.albaの根皮をメタノール水溶液で抽出し、得られた抽出物を連続してEtOAc、n-BuOH、およびH2O2に分配しました。 EtOAc画分のSiO2、ODS、およびセファデックスLH -20カラムクロマトグラフィーを繰り返すと、クワノンG(1)、クワナE(2)、クワナT(3)、サンゲノンA(4)、サンゲノンなどの11の化合物が得られました。 M(5)、サンゲノールA(6)、マルベロフランB(7)、マルベロフランG(8)、モラシンM(9)、モラシンO(10)、およびノラルトカルパノン(11)[6,19,20]。 M.albaから単離された11の化合物の化学構造を図1に示します。これらの化合物の細胞毒性効果を決定するために、3-(4、5-ジメチルチアゾール-2-イル){{ 26}}。5-ジフェニルテトラゾリウムブロミド(MTT)アッセイを実施し、BV2およびRAW264.7細胞を、最大80μMの濃度で、示された濃度の化合物で48時間処理しました。 (図2)。 化合物2、3、および4は80μMで毒性作用を示し、化合物5は40μMで毒性作用を示しました。 毒性評価の結果に基づいて、抗炎症効果に関するその後の研究のために非毒性濃度範囲が選択されました(40 uMの化合物2、3、4、200μMの化合物5、および80μMの他の化合物)。 。

2.2.BV2およびRAW264.7細胞における炎症性因子およびiNOSタンパク質の発現に対するM.albaから単離されたl1化合物の効果
NOは、心臓血管系、神経系、および神経系のフリーラジカルです。免疫システム。 細胞内の恒常性を維持し、神経伝達物質を輸送し、抗炎症作用と細胞毒性を調節します。 しかし、大量のNOが生成されると、血管拡張、細胞毒性、組織損傷など、体に有害な影響を及ぼします[21,22]。 次に、LPS誘導BV2およびRAW264.7細胞での亜硝酸塩生成に対するこれらの化合物の影響を調べました。 LPS(1 ug / mL)で24時間刺激する前に、細胞をさまざまな濃度の化合物で2時間処理しました。 化合物の中で、化合物3(kuwanonT)と4(sanggenon A)のみが、BV2とRAW264.7の両方の細胞株で亜硝酸塩の生成を有意に抑制しました(図3)。 さらに、化合物前処理後のLPS処理グループとLPS前処理後の化合物処理グループの間で、亜硝酸塩生成の抑制効果を比較するための追加の実験を実施しました。 その結果、2つの実験グループ間で亜硝酸塩生成の抑制効果に差はありませんでした(補足図S1)。 したがって、本研究では、LPS処理前の2〜3時間以内に化合物による前処理を用いて以下の実験を行った。

NOの産生は、炎症誘発性タンパク質誘導型一酸化窒素合成酵素(iNOS)によって増加します。 ただし、iNOSの過剰発現は、疾患の病態生理を著しく損ないます[23]。 化合物3および4は、濃度依存的にiNOSの発現を阻害しました(図4)。 本発明者らは、BV2およびRAW264.7細胞における炎症性因子のLPS誘導性発現に対する化合物3および4の効果を調べた。 細胞を異なる濃度の化合物3および4で2時間処理した後、LPS(1 ug / mL)で24時間刺激しました。 両方の化合物は、BV2およびRAW264.7細胞におけるPGE2、TNF、およびIL -6のLPS誘導性発現を有意に阻害しました(図5)。 結果は、化合物3および4による前処理がBV2およびRAW264.7細胞におけるLPS誘発性炎症を抑制したことを示しているように見えた。


2.3.BV2およびRAW264.7細胞におけるNF-xB転座に対する化合物3および4の効果
NF-kBはiNOSの発現を調節する転写因子です[24]。 通常のNF-kBは、IKBなどの調節タンパク質と複合体を形成することにより、不活性型のままです。 しかし、LPSによって活性化されると、IkBaはリン酸化によって分解され、NF-kB(p65など)は核に移行し[25]、炎症性メディエーター遺伝子を促進し、炎症性因子の発現を誘導します[26]。 LPS活性化BV2およびRAW264.7細胞における炎症誘発性因子の産生に対する化合物3および4の阻害効果をさらに調べるために、化合物3および4、LPS、または両方とも抗p65FITC標識抗体を使用しています。 核染色にはDAPIを使用しました。 対照群では、p65の発現が細胞質ゾルで検出された。 ただし、LPS誘導細胞では、DAPIとp65染色のマージされた画像に示されているように、p65の蓄積が核で検出されました。 さらに、化合物3および4は、LPS誘導細胞と比較して、LPSを介したNF-KB(p65)DNA結合活性(図6A、B)および核転座(図6C-F)の増加を著しく減少させました。 これらの発見は、化合物3および4がLPS刺激によるNF-kB核転座の負の調節因子であることを示しています。

2.4。BV2およびRAW264.7のNrf2/HO-1経路に対する化合物3および4の影響
細胞ヘムオキシゲナーゼ-1(HO -1)は核因子E 2-関連因子2(Nrf2)の標的であり、Nrf2 /HO-1経路は強力な抗酸化シグナル伝達システムです一酸化炭素(CO)、ビリベルジン、およびヘム中の遊離鉄を促進するため[27]。 ヘム異化作用のガス状代謝物である一酸化炭素は、血管拡張および炎症誘発性反応の調節効果を示します[28]。 さらに、HO -1は、炎症や酸化ストレスから細胞を保護し、活性化マクロファージでの亜硝酸塩産生を調節する上で重要な役割を果たすことも知られています[29]。 ウエスタンブロッティングを行って、化合物3および4がHO -1の発現レベルを増加させるかどうかを調べました。ここで、よく知られているHO -1インデューサーであるコバルトプロトポルフィリン(CoPP)をポジティブコントロールとして使用し、HO{{を増加させました。 16}}タンパク質発現。 [30]。 結果は、化合物3および4もHO -1の発現をアップレギュレーションすることを明らかにしました(図7)。 さらに、化合物3および4がNrf2の活性化を調節するかどうかを調べました。 Nrf2の核への移行は時間依存的に増加し、化合物3および4がBV2およびRAW264.7細胞のNrf2 / HO -1経路を有意にアップレギュレートしたことを示しています(図8)。


化合物3および4の抗神経炎症および抗炎症効果がBV2およびRAW264.7細胞におけるHO-1発現と相関しているかどうかをさらに調べるために、スズプロトポルフィリン-IX(SNPP)を使用して一連の実験を行いました。これはHO-1の選択的活性阻害剤です。 HO -1の発現をダウンレギュレーションできるSNPPを使用して、HO-1がLPSによって誘発される炎症反応に対する上記の化合物の阻害効果を媒介するかどうかを調べました【31】。 細胞を20μMの化合物3および4で2時間、50 uM SNPPの有無にかかわらず処理した後、LPSで24時間処理しました。 化合物3および4は、LPS誘導BV2およびRAW264.7細胞での亜硝酸塩産生を減少させましたが、それらの抗炎症効果はSNPP処理によって逆転しました(図9)。 SNPP単独では、LPS刺激後の一酸化窒素(NO)産生に影響を与えず、化合物3および4の抗炎症効果がHO-1発現によって調節されていることを示唆しています。


3.ディスカッション
本研究は、桑名TとサンゲノンAがBV2とRAW264.7細胞でLPS誘発性炎症を抑制したことを示した。 これらの化合物は、LPSが誘導するNO、PGE2、およびIL -6とTNF-を含む炎症性サイトカインの産生、およびBV2とRAW264.7細胞の両方でのiNOSとCOX-2の発現を阻害しました。 これらの結果は、桑奈TとサンゲノンAがNF-kBシグナル伝達経路を不活性化することにより抗炎症作用を発揮したことを示しています。 また、これらの化合物は、Nrf2の活性化によりHO -1の発現を誘導しました。また、これらの化合物は、Nrf2の活性化によりHO -1の発現を誘導し、この効果も関連していることが確認されました。抗炎症作用。
Nitric oxide synthase (NOS) has three isoforms: neuronal NOS (nNOS; NOS1), iNOS (NOS2), and endothelial eNOS (NOS3)[32]. iNOS is an inducible form that is upregulated in response to various stimuli, including LPS, cytokines, chemokines, and stress, while nNOS and eNOS are constitutive forms that catalyze continuous NO secretion at basal concentrations J33]. Similar to iNOS, COX-2 is also an inducible form upregulated by various inflammatory stimuli, such as cytokines, growth factors, tumor promoters, and bacterial LPS[34]. Its other isoform, COX-1, is constitutively expressed in most tissues under normal physiological conditions [35].COX-2 exerts an enzymatic effect on the conversion of prostaglandin H2 (PGH2), which converts arachidonic acid to PGE, prostaglandin 12(PGI2), prostaglandin F2a (PGF>。)、およびトロンボキサンA2(TXA、)[361。 炎症性条件下では、iNOSとCOX -2のレベルが上昇し、それぞれNOとPGE2の過剰産生を引き起こし、炎症性疾患の悪化を引き起こします[37]。 本研究では、最初にM.albaから単離された11の化合物を評価して、LPSで刺激されたBV2およびRAW264.7細胞でNO産生が阻害されるかどうかを判断しました。 私たちの結果は、クワノンTとサンゲノンAがBV2細胞とRAW264.7細胞の両方で最も強い抑制効果を発揮することを示しました(図3)。以前の研究では、モラシンMは肺胞マクロファージに対して抗炎症効果を示しましたが、私たちの結果は異なることを示しましたパターン。 ただし、細胞ごとに特性が異なるため、同じメカニズムでも異なる活動が現れる可能性がありますJ38]。 したがって、本論文の結果と同様に、モラシンMは治療濃度までBV2およびRAW264.7細胞に抗炎症作用がないことが確認された。 したがって、クワノンTとサンゲノンAがさらなる実験のために選択されました。
サイトカインは、炎症反応と免疫反応に複雑な調節作用を及ぼします[39]。 マクロファージとミクログリア細胞の活性化は炎症性サイトカインJ40の分泌を促進し、この分泌の増加はさらなるサイトカイン放出につながります[41]。 IL -6は主要なサイトカインの1つであり、炎症、免疫応答、造血の原因となる可溶性メディエーターです[42]。 IL -6シグナル伝達は、膜結合型IL -6受容体(mblL6R)への結合と可溶性IL -6受容体(sIL6R)の認識を含む2つの異なるメカニズムによって調節されます[43]。 両方のメカニズムは糖タンパク質(GP)130の活性化に関連しており、ヤヌスキナーゼ(IAK)/シグナルトランスデューサーおよび転写活性化因子(STAT)キナーゼ、ホスホイノシチド3-キナーゼ(PI3K)を含む下流のシグナル伝達分子の活性化をもたらします。 )、およびマイトジェン活性化プロテインキナーゼ(MAPK)[44]。 IL -6は、癌、感染症、自己免疫疾患、膵臓疾患、および心血管疾患の患者の炎症レベルを予測および評価するために使用されます。
もう1つの主要なサイトカインであるTNF-も、免疫細胞の増殖、アポトーシス、壊死、生存など、多くの免疫および炎症過程で重要な役割を果たします。 TNF-の生物学的効果は、腫瘍壊死因子受容体(TNFR)1とTNFR2の2つの異なる受容体に結合することによって調節されます。 TNFR2はTNF-に対する結合親和性が低く、その結果、TNFR1よりもTNFR2からTNF-がより容易に解離するため、TNFR1は、ほとんどの細胞におけるTNF-活性の主要なメディエーターである。 TNF-シグナル伝達の異常およびTNF-の過剰産生は、関節リウマチ、乾癬、クローン病、アテローム性動脈硬化症、敗血症、糖尿病、および肥満を含む多くの疾患の発症につながります[45,46。 したがって、炎症反応および炎症性疾患の発症を抑制および予防するために、炎症誘発性サイトカインの産生を阻害することが重要です。 本研究では、クワノンTとサンゲノンAは、BV2細胞とRAW264.7細胞の両方でLPSが誘導するIL-6とTNF-の産生を阻害しました。
NF-KBは最も遍在する転写因子であり[47]、NF-kBシグナル伝達は、iNOS、COX -2、炎症性サイトカインをコードする遺伝子など、炎症反応に関連する遺伝子の発現に重要な役割を果たします[47]。 48]。 不活化状態では、NF-kBサブユニットは、その阻害剤タンパク質である阻害剤カッパB(kB)-に結合した細胞質に存在します。 LPSやサイトカインを含むいくつかの刺激は、IkB-のリン酸化と分解を誘発し、NF-kBサブユニットの核への遊離と転座を可能にします。 転座したサブユニットは、DNAの標的遺伝子のkB部位に結合し、炎症誘発性メディエーターをコードする遺伝子の転写を誘導します[49]。 したがって、NF-kB経路の不活性化は炎症性疾患の治療標的となる可能性があります。 本研究では、クワノンTとサンゲノンAによる前処理は、NF-kBサブユニットのDNA結合活性と核移行を阻害することにより、LPSが誘導するNF-kBシグナル伝達の活性化を阻害しました(図6)。 これらの結果は、クワノンTとサンゲノンAの抗炎症作用がNF-kBシグナル伝達経路の調節を介して発揮されることを示唆しています。
通常の条件下では、Nrf2は細胞質内のケルチ様ECH関連タンパク質1(Keap1)に結合します。 ただし、Keaplから解離し、核に移行し、DNA上の抗酸化応答エレメント(ARE)部位に結合して、HO -1、NAD(P)Hをコードする遺伝子を含むさまざまな抗酸化遺伝子の発現を引き起こします。 :キノンオキシドレダクターゼ1(NQO1)、ペルオキシレドキシン(Prx)、およびチオレドキシン(Trx)[50]。 特に、HO -1は抗炎症作用に関連していることが知られており、その活性は、HO{{12の酵素活性によってヘムから生成される3つの副産物の1つであるCOのレベルによって表されます。 }}[51]。 本研究では、Nrf2を活性化することによりクワノンTとサンゲノンAがHO -1の発現を誘導することを発見しました(図7および8)。 さらに、HO -1活性の選択的阻害剤であるSNPPを使用して、クワノンTとサンゲノンAの抗炎症効果とHO-1の発現との相関関係を検証しました。 NOおよびTNF-産生およびNF-kB活性化に対するクワノンTおよびサンゲノンAの阻害効果は、SNPPとの同時処理によって部分的に逆転しました(図9)。 これらの結果は、クワノンTとサンゲノンAの抗炎症作用がHO-1の発現によって調節されていることを示唆しています。

4.材料と方法
4.1。 材料
Roswell Park Memorial Institute 1640(RPMI 1640)およびウシ胎児血清は、Gibco BRL Co.(Grand Island、NY、USA)から購入しました。 すべての化学物質は、Sigma-Aldrich Chemical Co.(セントルイス、ミズーリ州、米国)から入手しました。 一次抗体anti-iNOS、anti - - actin、anti-p65、およびanti-HO -1は、Santa Cruz Biotechnology(Santa Cruz、CA、USA)から購入しました。 ミリポアの抗ウサギおよび抗マウス二次抗体
(米国マサチューセッツ州ビレリカ)。 PGE 、、 IL -6、およびTNF-用の酵素結合免疫吸着測定法(ELISA)キットは、R&DSystems Inc.(ミネアポリス、ミネソタ州、米国)から購入しました。 Morus albaからの11の化合物の分離と構造決定は、他の場所で説明されています[19-21]。
4.2。 細胞培養および生存率アッセイ
BV2およびRAW264.7細胞は、1%抗生物質(ペニシリン-ストレプトマイシン)および10%熱不活化FBSを添加したRPMI1640に5×10⁵細胞/mLの密度で播種されました。 細胞は、前述の方法[52]に従って、95%の空気雰囲気で、加湿された5%のCO中で37度で培養されました。
4.3。 NO生産の測定
NO酸化の安定した最終生成物である亜硝酸塩の生成は、細胞内のNO生成の指標として測定されました。 簡単に説明すると、馴化培地中の亜硝酸塩の濃度は、Griess反応に基づく方法を使用して決定されました[53]。 アッセイの詳細は以前に記載されています[54]。
4.4。 PGE2 Ass4y /
各サンプル中のPGEzの濃度は、前述の方法[55]に従って、市販のELISAキットを使用して測定しました。
4.5。IL-6およびTNF-aレベルの測定
市販のキット(BioLegend、San Diego、CA、USA)を使用して、IL-6およびTNF-のレベルを測定するために培地を収集しました。 製造業者の指示に従ってアッセイを実施した。 簡単に説明すると、BV2およびRAW264.7細胞を24-ウェル培養プレートに20×10細胞/ウェルの密度で播種しました。 インキュベーション後、上清を回収し、ELISAキットでIL-6およびTNF-の濃度を測定するために使用しました。
4.6。 ウエスタンブロット分析
ペレット化したBV2およびRAW264.7細胞をPBSで洗浄し、RIPAバッファーで溶解しました。 Bio-Rad Laboratories(#5000006; Hercules、CA、USA)から入手したタンパク質アッセイ色素試薬濃縮物を使用して等量のタンパク質を定量し、サンプルローディングバッファーで混合し、SDS-PAGEを使用して分離しました。 次に、分離したタンパク質をニトロセルロースメンブレンに転写しました。 膜への非特異的結合は、スキムミルクの溶液中でのインキュベーションによってブロックされました。 メンブレンを一次抗体(すべて1:1000で使用)と4度で一晩インキュベートした後、西洋ワサビペルオキシダーゼ標識二次抗体(すべて1:5000で使用)と反応させました(ミリポア)[ 31]。
4.7.NF-xBの局在と免疫蛍光分析
NF-kBの局在を研究するために、BV2およびRAW264.7細胞をLab-Tek IIチャンバースライド上で培養し、LPS刺激(0。5 ug / mL)の前に2時間異なる濃度の化合物で処理しました。 h。 次に、細胞をホルマリンで固定し、冷アセトンで透過処理し、抗p65抗体(1:200)でプローブした後、フルオレセインイソチオシアネート標識二次抗体(1:1000)(Alexa Fluor 488、Invitrogen)でインキュベートしました。 核を視覚化するために、細胞を1 ug /mLの4'6-ジアミジノ-2-フェニルインドール(DAPIで30分間、PBSで5分間洗浄、50μLのVectaShield(Vector Laboratories、バーリンゲーム、カリフォルニア、米国)。 Zeiss蛍光顕微鏡(Provis AX70; Olympus Optical Co.、Tokyo、Japan)を使用して、染色された細胞を可視化し、画像を取得しました。 [31]。
4.8。 統計分析
データは、3回の独立した実験の平均±標準偏差として表されます。 一元配置分散分析とそれに続くテューキーの多重比較検定を使用して、3つのグループ間の差異を比較しました。 統計分析は、GraphPad Prismソフトウェア(バージョン5.01、GraphPad Software Inc.、米国カリフォルニア州サンディエゴ)を使用して実行されました。
5。結論
クワノンTとサンゲノンAは、NO、PGE2、IL -6、TNF-の産生、およびiNOSとCOX {{8}の発現を阻害することにより、LPS誘導BV2およびRAW264.7細胞に抗炎症作用を発揮しました。 }。 我々の結果は、これらの阻害効果が、クワノンTおよびサンゲノンAでの処理によるNF-KB経路の不活性化を介して媒介されることを示した。さらに、これらの化合物は、Nrf2の核への移行を活性化することによってHO-1の発現を誘導した。 。 我々の発見は、クワノンTとサンゲノンAによって誘発されたHO -1発現が、LPS誘発性炎症に対する抑制効果と関連していることを示した。 一緒に取られて、私たちの結果は、M。アルブから分離されたクワナTとサンゲノンAがアルツハイマー病やパーキンソン病などの神経炎症性疾患の治療薬と予防薬の開発の候補になる可能性があるという証拠を提供します。